
Jaký jiný titulek by si zasloužila událost tohoto druhu? Je extrémně nepravděpodobné, že by se v pan-avianní paleontologii do konce roku objevila událost s vyšším nebo alespoň srovnatelným významem, jaký přísluší popisu nového karcharodontosaura ze španělské spodní křídy.
To byl jeden z možných úvodů. Šlo by ale zvolit i jiný, delší:
Peří je jednou z "nejzrádnějších" struktur v ptačí a potažmo i obratlovčí evoluci. Minulý rok překvapil paleontologický svět popis druhu Tianyulong confuciusi, ptakopánvého dinosaura se štětinovitými strukturami na hřbetě a ocasu (Zheng et al. 2009). Fylogenetické interpretace takových objevů jsou vždy nejisté, a často na nich neexistuje shoda po mnoho desítek let, jak ukázal např. popis archaeopteryga. Protože však nové kladistické studie přesunuly heterodontosauridy, mezi které Tianyulong patří, na samou bázi kladu Ornithischia, zdá se být interpretace tuhých dutých vláken čínského dinosaura jako homologických s protopeřím celurosaurů a "pravým" peřím kladu Aves o něco parsimonnějších než např. hypotéza, podle které jde o synapomorfii spekulativního kladu heterodontosauriformů (Marginocephalia + Heterodontosauridae; Xu et al. 2006). Celá myšlenka vláknitého protopeří společného všem ornitodirům je vratká: opírá se např. o značně kritizovaný nález vláknitých útvarů na otiscích břicha a nohou polského dilofosauridního teropoda ze spodní křídy, známých pod označením PMNH-EHC 1/7. Jako důkaz o přítomnosti protopeří tento nález poprvé interpretoval Gierliński (1996) a podpořil jej mj. Kundrát (2004). Pravdou je, že PMNH-EHC 1/7 je tím jediným, co podporuje přítomnost protopeří v obrovském fylogenetickém vakuu mezi ranými celurosaury a primitivními ptakopánvými. Ostatní paleontologové jsou k této interpretaci skeptičtí - jejich skepticizmus má ovšem ten problém, jak tomu v podobných případech bývá často (Gerta Keller a její zpožděná K/P katastrofa by mohla vyprávět), že nebyl publikován v recenzované literatuře. V současnosti je však vznik peří u samého počátku kladu Ornithodira někdy v raném středním triasu tím nejpravděpodobnějším vysvětlením pozorovaných faktů. Tianyulong měl pro ustanovení této hypotézy zásadní význam - podrobný rozbor jeho tělesného pokryvu, který by homologii s peřím přesvědčivě vyvrátil, se dosud neobjevil a asi se jen tak neobjeví. Nebyl ale sám a myšlenka stejně široké distribuce peří měla své zastánce už dříve. Ve skutečnosti už Bakker (1975) použil označení "hairlike feathers" pro integument pterosaura druhu Sordes pilosus a spolu s šupinami longiskvamy, údajně představujícími ideální počáteční stav pera, jej použil jako důkaz pro tvrzení, že první endotermní archosauři s tepelně izolujícím pokryvem těla se objevili už v raném triasu. Czerkas & Ji (2002) naznačili možnou homologii "srsti" pterosaurů s protopeřím známým od odvozených teropodů - tento integument, podobně jako tianyulongovy štětiny, docela dobře odpovídají prvním fázím modelu evoluce peří, který Prum vytvořil o několik let dříve. Ve stejné době Mayr (2002) popsal dlouhé duté štětiny od bazálního ceratopa psittakosaura. Bylo tedy třeba hned několika objevů, abychom se dostali k současné, stále dosti spekulativní hypotéze.
Ani objev obrysového peří u "neptačích" (rozuměj "stojících mimo 'Archaeopteryx node'") dinosaurů, často uváděný jako poslední hřebíček do rakve odpůrců teropodní hypotézy (Gee 1998), nebyl záležitostí jediného přelomového objevu. Lowe (1944) předpovídal objev peří u ornitolesta, bazálního maniraptora. Bakker & Galton (1974) poznamenali, že peří mohlo být u ptákům podobných teropodů značně rozšířené; v Bakkerově populárně naučném článku se také objevila ilustrace celofyzoida syntarza s chocholkou obrysového peří na hlavě (Bakker 1975). Thulborn (1984) předložil takovou topologii celurosaurů, ve které by obrysovým peřím musel podle pravidla fylogenetického ohraničování ("phylogenetic bracketing") disponovat nejen dromaeosauridi a troodontidi, ale i ornitomimosauři, Avimimus a tyrannosauroidi. Gauthier (1986) vyjádřil své značné pochybnosti o tom, že peří by bylo unikátní pouze pro avialany (odpovídající v té době opět 'Archaeopteryx node') a o dva roky později už se objevila kniha, jejíž autor neváhal umístit peří téměř na jakéhokoli teropoda, a zkrátka se nedržel ani u peří moderního - Paulovi Predatory Dinosaurs of the World (Paul 1988). Kurzanov (1987) mezitím bez jakékoli odezvy navrhl, že útvary na posteriorní straně loketní kosti avimima by mohly být "quill knobs", dobře známé od žijících ptáků v souvislosti s letkami. Popis skutečných per s kompaktním planárním praporem a pevným rachisem od mimo-avialannch dinosaurů už byl tedy spíše jen třešničkou na dortu, kterou navíc následné studie hrozily odsunout do irelevance: Jones et al. (2000) shledali kaudipteryga být spíše nelétavým ptákem než opeřeným dinosaurem a další BANDiti se tohoto výkladu rádi chytli (Feduccia 2002; Martin 2004).
Nový teropod ze Španělska představuje objev, který dosavadní představy o vývoji peří může zrevolucionalizovat daleko víc, než Tianyulong v roce 2009 a Caudipteryx s protarchaeopterygem v roce 1998.

A konečně třetí možný úvod by s "objevem roku" zacházel jako s každým jiným nově popsaným taxonem a asi nejrychleji by se dostal k věci:
Ortega et al. (2010) popsali v prestižním žurnálu Nature nový druh karcharodontosauří tetanury pod názvem Concavenator corcovatus. Už místo publikace o něčem svědčí: tabloidy Nature a Science se nijak zvlášť netají s tím, že většinu publikací odmítají beze čtení. To, co se sem dostane, jsou alespoň v oblasti paleontologie obratlovců zásadní objevy svého oboru, a je jen symbolické, že popisy kaudipteryga a tianyulonga byly publikovány v tomtéž časopise. Concavenator (doslova "hrbatý lovec") pochází ze spodní křídy - přesněji barremu - španělského souvrství Las Hoyas, výborně známého svými nálezy enantiornitních ptáků (Iberomesornis a Eoalulavis pocházejí právě odsuď). Tato lokalita patří mezi tzv. Konservat-Lagerstätten - místa s výjimečnou kvalitou fosilií, ze kterých jsou často odkrývány kompletní kostry, otisky kůže a v některých případech dokonce i měkké tkáně nebo trojrozměrně uchované fosilie. Asi šestimetrový predátor neměl s drobným iberomesornisem mnoho společného, oba však mohou být stejně významnými pro ptačí evoluci. To však není zdaleka jediná zajímavá věc na novém objevu. Svým bizarním vzhledem Concavenator dále rozšiřuje paletu dinosauří disparity (morfologické různorodosti) a umožňuje lépe pochopit evoluci karcharodontosaurů. Tito teropodi (autoři se brání použít slovo "karcharodontosaurid", které nyní odkazuje na poněkud méně obsažný klad než dříve - Benson et al. [2010] tento původní význam přesunuli na jméno Carcharodontosauria, které kromě "tradičních" karcharodontosauridů zahrnuje i nově rozeznaný rozsáhlý klad neovenatoridů) během své evoluční historie dali vzniknout jedněm z největších dinosauřích predátorů vůbec, zastoupených argentinským giganotosaurem a mapusaurem. Autoři připomínají, že až donedávna byli karcharodontosauři pokládáni za skupinu výhradně gondwanských svrchnokřídových dravců, v posledních letech se ale ukázalo, že jejich historie je komplikovanější, než se dříve myslelo, a že k prvotní diverzifikaci došlo už ve spodní křídě, přičemž její potomci osídlili také Laurasii. Holotyp druhu Concavenator corcovatus s označením MCCM-LH 6666 tvoří prakticky kompletní a výjimečně zachovalá kostra. Kladistická analýza potvrzuje jeho příslušnost mezi bazálními karcharodontosaury, což zřejmě znamená, že nejde ani o neovenatorida, ani o karcharodontosaurida. To je z definice všech tří kladů klidně možné: pokud budeme předpokládat, že neovenatoridi a karcharodontosauridi mají blíže k sobě navzájem, než mají oba k allosauridům nebo sinraptoridům, je teoreticky možná existence teropoda, který by byl blíže příbuzný karcharodontosaurovi než allosaurovi nebo sinraptorovi, ale stál by mimo klad (Carcharodontosaurus + Neovenator).

Pozn.: Tyto spekulace jsem napsal bez doplňkových informací, které jsou volně dostupné a ve kterých systematika dostává (jako obvykle) značný prostor. Ukázalo se, že mé původní předpoklady byly správné: striktní konsenzus 24 nejparsimonnějších stromků odkryl topologii karcharodontosaurů jako (Eocarcharia + Concavenator + Neovenatoridae + Carcharodontosauridae). 50% konsenzus, který umožňuje dosáhnout vyššího rozlišení (= méně polytomií) za cenu slaběji podložených kladů, přinesl drasticky odlišnou fylogenetickou hypotézu, ve které se Concavenator stává karcharodontosauridem: (Neovenatoridae + (Eocarcharia + (Concavenator + ostatní karcharodontosauridi))). Klad zahrnující konkavenatora a všechny odvozenější karcharodontosauridy je přitom velmi slabě podložen (54%). Obě analýzy shodně podporují neotetanury bez bazální polytomie (tzn. rozdělené pouze na celurosaury a karnosaury) a ekvivalenci kladů Carnosauria a Allosauroidea, co se obsahu týče. (Což znamená, že klad všech teropodů blíže příbuzných allosaurovi než ptákům má pod touto konkrétní hypotézou stejný obsah jako klad tvořený sinraptorem, allosaurem, jejich posledním společným předkem a všemi jeho potomky.) Carnosauria má vnitřní strukturu v podobě (Sinraptoridae + (Allosaurus + Carcharodontosauria)), přičemž klad allosaura a karcharodonosaurů s vyloučením sinraptoridů má stoprocentní podporu. V ostatních oblastech kladogramu se toho tolik neděje. Ve stromku s 50% konsenzem mají tetanury pěknou strukturu v podobě (Chuandongocoelurus + (Megalosauroidea + Neotetanurae)). V původním stromku bázi tetanur okupují nejen neotetanury a Chuandongocoelurus, ale také chronicky nestabilní Monolophosaurus, ořezaní megalosauroidi a samostatně stojící klad (Marshosaurus + (Condorraptor + Piatnitzkysaurus)), který se k megalosauroidům přidal jen s 58% podporou.
Unikátní apomorfií a snad nejzvláštnějším znakem konkavenatora jsou protáhlé neurální trny na dvou posledních posteriorních dorzálech, které formují zašpičatělý, hrbu podobný útvar. Média, která o bizarním teropodovi nezapomněla poreferovat, si nejvíce oblíbila vysvětlení v podobě zásobárny tuku. Stejná funkce byla již dříve navržena např. pro extrémně prodloužené dorzály ornitopoda ouranosaura, v kontrastu s tradičnějším vysvětlením v podobě plachty. Darren Naish s takovými teoriemi ve svém článku nesouhlasí a preferuje některou z alternativ: podle Naishe nelze vyloučit, že útvar byl částečně zanořený v tuku, ale podobné hypotézy - zvláště jsou-li prosazovány téměř dogmaticky - ignorují skutečnost, že ne všichni śuchozemští obratlovci jsou savci. Alternativní vysvětlení zahrnují termoregulační funkci (podle které by hrb zvyšoval plochu těla zvířete a umožňoval tak větší tepelné ztráty - ze stejného důvodu mají afričtí sloni své obrovské uši), komunikační úlohu v rámci smečky nebo ornamentaci, s využitím např. v pohlavním výběru. Vedoucí autor studie, F. Ortega, v komentářích pro média přiznal, že osobně nefavorizuje žádnou z těchto hypotéz. Ed Yong na svém blogu nezapomněl připomenout, že žijící savci s tukovým hrbem, jako je např. zebu indický, pro tento útvar nepotřebují podporu v podobě modifikovaných obratlů. Jaime Headden na Dinosaur Mailing Listu argumentuje podobně: hrb velblouda se neprojevuje na morfologii obratlů v příslušných místech hřbetu.

Gregory S. Paul na DML přišel s výhradou k ilustracím, které se po oznámení konkavenatorova objevu vynořily s opravdu obdivuhodnou rychlostí. Podle něj měl španělský karcharodontosaur hrby hned dva: neurální trny jsou totiž údajně prodloužené i na bázi ocasu, zatímco ty nad pánví ne (slovo "údajně" zde neodráží nějakou apriorní nedůvěru k Paulovým závěrům, ale jednoduše fakt, že nemám k dispozici původní studii, jen fotografie, které přetiskla média a blogy). Výsledkem by byly dva hrby, oddělené křížovou kostí. U ouranosaura je údajně podobný pokles nad pánví také patrný, i když v méně extrémní podobě. Výsledkem by bylo, že plachta, ať už termoregulační nebo čistě ornamentační, by se stala přijatelnější interpretací než tukový hrb. Heinrich Mallison však podotknul, že takové vývody jsou předčasné. Již delší dobu víme, že ocasy dinosaurů byly podstatně vyšší, než jak bývají většinou rekonstruovány - a ani ilustrace G. S. Paula zde nejsou výjimkou - a prodloužené neurální trny kaudálů se mohly vztahovat prostě k ocasnímu svalstvu. Snad jen kdyby byl jeden obratel výrazně vyšší než ostatní, šlo by předpokládat, že plachta by byla napjatá mezi ním a presakrálním hrbem, což však neodpovídá způsobu, jakým je plachta podpírána po celé své délce u spinosaura a ouranosaura. Paul s určitou jedovatostí Mallisonovi odpověděl; věcným argumentem byl v podstatě jen fakt, že první kaudály konkavenatora jsou vyšší, než u jiných teropodů. Jaime Headden poukázal na to, že je možné, že neurální trny křížových obratlů se vůbec nedochovaly, což by činilo jakoukoli diskuzi o tvaru a počtu hrbů/plachty bezpředmětnou - snad by šlo předpokládat dlouhou, zaoblenou strukturu sahající od anteriorních kaudálů k zadním hřbetním obratlům, podstatně delší a jinak tvarovanou, než špičatý hrb na dosavadních ilustracích (viz výše). Následující diskutující Headdena opravil: sakrální neurální trny zřejmě dochované jsou, ale nebyly vypreparovány kvůli měkké tkáni, která se zdá být přítomna hned na kostí kyčelní. Zdrojem jsou v tomto případě doplňkové informace ke studii, které i takový žurnál, jako je Nature, poskytuje zdarma.
Dosud však nepadla ani zmínka o tom, co by mohlo učinit konkavenatora tak převratným bodem v evoluci ptáků. Jde o sérii hrbolků na loketní kosti. Něco takového už známe od maniraptorů, včetně velociraptora, ichtyornise a některých žijících ptáků. Říká se jim "quill knobs" a jsou to útvary, pomocí kterých se brk letek upíná na kost skrze folikulární vazy (folikul = perový váček, analogický s vlasovým váčkem savčí srst). Autoři navrhují, že Concavenator disponoval stejný podobnými integumentárními strukturami vyrůstajícími z folikulu a připojenými k loketní kosti, a že hrbolky na ulně jsou skutečně homologické s "quill knobs".
To by znamenalo naprostou revoluci v našem pohledu na vývoj peří. Už jen samotná přítomnost peří u karcharodontosaura je naprosto neočekávaná, protože u podobných, velkotělých teropodů se předpokládala jeho absence. Např. z kůže karnotaura známe pouze síť drobných hrbolků různé velikosti, proloženou většími kónickými osteodermy, a i když byla potvrzena přítomnost peří u bazálních tyrannosauroidů, stále se předpokládá, že dospělci odvozených zástupců téhož kladu byli zcela bez peří (Xu et al. 2004). Tianyulong, pterosauří srst a PMNH-EHC 1/7 však opět ukazují, že alespoň fylogeneticky nejde o nic nemožného.
Skutečný problém spočívá v tom, že quill knobs spolehlivě indikují přítomnost peří moderního typu (Turner et al. 2007), tedy peří složeného z centrálního dutého ostnu a praporu, tvořeného primárními ("barbs") a sekundárními ("barbules") větvemi, navzájem vklíněnými do sebe pomocí háčkovitých útvarů, vytvářejících kompaktní profil. To, že quill knobs jsou spojeny právě s takovými pery víme naprosto jistě, protože pro toto tvrzení máme i přímou evidenci. Quill knobs např. nechybí ichtyornisovi, velmi blízkému příbuznému žijících ptáků (Neornithes). Protože ale víme z přímé evidence (otisků), že Archaeopteryx měl zcela moderní letky, a že Ichthyornis je zástupcem kladu (Archaeopteryx + Neornithes), můžeme si být přítomností těchto per zcela jisti. Podobně quill knobs na loketní kosti avimima nebo velociraptora (IGM 100/981) jsou zcela samozřejmě spojovány s moderními letkami, protože jak Avimimus, tak Velociraptor jsou zástupci kladu (Caudipteryx + Neornithes), přičemž od kaudipteryga víme o letkách z detailních otisků a u moderních ptáků je jejich přítomnost samozřejmá.

Jenže karcharodontosauridi jsou od kladu (Caudipteryx + Neornithes) hodně, hodně daleko. A quill knobs, když nic jiného, naprosto jasně dokazují přítomnost pevného centrálního ostnu. Jenže ten je v evoluci peří novinkou: objevil se dlouho potom, co jednoduchý filament získal základový folikul, poté, co se objevilo více vláken současně, poté, co se objevilo více větví odvětvujících se z jediného centrálního vlákna a potom, co toto primitivní pero získalo planární (rovinnou) formu (Xu & Guo 2009). To všechno ale víme díky fosiliím, jejichž fylogenetická pozice je zanořená hluboko uvnitř kladu zahrnujícího konkavenatora a moderní ptáky. Už tak není evoluce peří pěkně rozprostřená po celém kladogramu: až mezi maniraptory konečně narazíme na něco jiného, než jednoduché vlákno (morfotyp 1 sensu Xu & Guo 2009), a formy, které ukazují postupnou akvizici výše zmíněných znaků (centrálního vlákna, planární formy apod.) často nacházíme u zvířat, která už prokazatelně disponují moderními pery. U žijících ptáků je tomu konec konců také tak.
Concavenator však vyvolává i další otázky. Až dosud se zdálo, že všechna zvířata vykazující moderní, obrysové peří tvoří monofyletickou skupinu. Občas do ní sice byli zahrnování i alvarezsauridi a terizinosauři, od kterých letky neznáme, ale poslední analýzy ukazují, že stojí mimo ni (Hu et al. 2009; Zanno et al. 2009). Jedinou skupinou známou z fosilního záznamu, která letky zřejmě ztratila, jsou skanzoriopterygidi. To ale není zas takový problém, jelikož žijící kivi letky ztratil také (jak uvedl v jednom ze svých článků Matt Martyniuk, peří tohoto novozélandského ratita dosáhlo bodu, kdy připomíná kompsognatidy). Pokud by ale měl Concavenator letky také, znamenalo by to, že je museli druhotně ztratit bazální celurosauři typu scipionyga, kompsognatidi, tyrannosauroidi, ornitomimosauři, terizinosauři, alvarezsauridi a samozřejmě zbytek karnosaurů, aby si je bez jakéhokoli zjevného důvodu ponechal klad (Oviraptorosauria + Neornithes). Zde je dobré připomenout, že celurosauři mají podstatně více dokladů o svém integumentu než allosauroidi. Víme ale, že Allosaurus měl na kůži staré dobré keratinové "hrbolky", což naneštěstí nestačí: není nic neobvyklého na výskytu "šupin" i peří současně, jak dokládají i moderní ptáci (Hutchinson & Allen 2009). Konec konců, i od samotného konkavenatora jsou známy otisky kůže, a ty ukazují typicky teropodní vzorek kónických bulek a šupinek. Ty ovšem zákeřnému teropodovi zřejmě nebránily zároveň disponovat peřím, byť autoři netvrdí "na rovinu", že šlo o letky. Nazývají je "výběžky kůže homologické s peřím moderních ptaků jiného než šupinového původu". Důvodem je, že šupiny (které u dinosaurů sensu stricto stejně nikdy přítomné nebyly, ale to už je ohrané) nemají folikul, který by se potřeboval upínat ke kostem - jsou čistě epidermální - a otisky letek nebyly u předních končetin nalezeny. Naprostou drobností je pak rozšíření potvrzeného výskytu peří (ve volnějším smyslu slova) z celurosaurů na neotetanury, což by, pokud nejste konzervativní paleontolog ignorující několik výše zmíněných objevů, s nikým nemělo zvlášť otřást.
DML nezklamalo ani tentokrát. Několik účastníků začalo spekulovat, co se asi ke konkavenatorovým "quill knobs" připojovalo. Někteří připomněli myšlenku Darrena Naishe, že někteří maniraptoři mohli své primární letky modifikovat do jakýchci bodlin, které by se nedaly znečistit nebo poškodit, když se ruce zapojily do lovu kořisti. Tato spekulace nemá hmotnou oporu, ale není nemožná: je naivní představovat si evoluci peří lineárně, jako proces propracovávající se od jednoduchého výběžku pokožky k asymetrickým letkám. Už ocasní bodliny psittakosaura, pokud je pokládáme za informativní, takovou představu vyvracejí. Augusto Haro dokonce tyto spekulace spojil se zvětšenými osteodermy na zadní straně krokodýlích končetin, v pokusu identifikovat jakýsi všeobecný archosauří design. Mickey Mortimer, který na rozdíl od jiných diskutujících alespoň četl kompletní článek, má však úplně jiné mínění: konkavenatorovy quill knobs vůbec nejsou quill knobs. Problematická je totiž jejich pozice. U velociraptora byla popsána jako posteriorní (Turner et al. 2007), autoři konkavenatorovy deskripce ji popisují jako posterolaterální (Ortega et al. 2010), ale M. Mortimerovi se zdá být spíše anterolaterální. Vybíhají od bicipitálního výčnělku (odvozeno od slova "biceps", v tomto případě samozřejmě znamenajícího dvajhlavý sval pažní) k plošce, kde se koketní kost kloubí s kostí vřetenní, což údajně není nijak zvlášť blízko kůži. Podle Mortimera jde spíše o intermuskulární linii, tedy jakýsi hřebínek, oddělující na povrchu kosti místa pro úpon různých svalů. Zde by vhodnými kandidáty mohly být M. flexor digitorus profundus, čili hluboký ohybač prstu, a M. adductor pollices longus (dlouhý přitahovač palce ruky). Oddělovat by je měla přesně stejná linie, na které se na konkavenatorově paži vyskytují hrbolky. Augusto Haro ale připomněl, že u krokodýlů zase stejná linie odpovídá hranici mezi M. extensor carpi radialis brevis a M. flexor ulnaris - mezi krátkým zevním natahovačem zápěstí a vnitřním ohybačem zápěstí (Meers 2003). Mickey Mortimer tuto možnost vzal v úvahu a připravil malé srovnání:


Orientace artikulárního povrchu pro vřetenní kost na tomto srovnání skutečně naznačuje, že loketní kost konkavenatora byla vyfotografována spíše z anterolaterálního než posterolaterálního pohledu. To by znamenalo, že "quill knobs" jsou na špatné straně kosti, a to by zasadilo docela velkou ránu jejich identifikaci jako quill knobs.
Ke stejným výsledkům došel nezávisle na Mortimerovi a Harovi Darren Naish. Ten ve svém článku zdůrazňuje, že přítomnost quill knobs neznamená přítomnost moderního peří, ale v tomto případě spíše tuhých, krátkých integumentárních "přívěšků", které nemusely pera příliš připomínat - pouze s nimi byly homologické. (To samozřejmě možné je, ale dosud jsme neviděli quill knobs nikde jinde, než mezi dinosaury s obrysovým peřím. U terizinosaurů, tyrannosauroidů, kompsognatidů a ani ptakopánvých, kteří všichni mají strukturně podstatně jednodušší protopeří, se quill knobs nevyskytují.) Dál už ovšem Naish formuluje o něco srozumitelnějším jazykem v podstatě stejné výhrady, jaké měl Mortimer: hrbolky na ulně konkavenatora jsou na loketní kosti umístěny moc vysoko na boční straně kosti, zatímco u ptáků a dromaeosauridů jsou níže - blíž zadnímu okraji, nebo přímo na něm. Fakt, na který D. Naish upozorňuje poprvé, je nepravidelné rozmístění struktur - ptáci mají své quill knobs rozmístěny v docela pravidelných rozestupech. Prý ale nejde o hlavní protiargumenty, protože v prvotních stadiích evoluce nějakého znaku lze podobné odchylky očekávat. Nejdůležitější výhradou je, že podobné útvary se vyskytují na intermuskulárních liniích savců a u teropodů jsou zdokumentovány z holenní kosti aristosucha. Zřejmě reprezentují částečně osifikovaná místa úponu vazivových povázek.
Aby toho nebylo málo, Ville Sinkkonen na blogu předvádí úskalí teorie intermuskulární linie: argumentuje, že při rekonstrukci zvířete, které mělo z žijících organizmů zdaleka nejblíže k ptákům, není dobré na ptáky zapomenout. A ti, na rozdíl od krokodýlů, nemají krátký zevní natahovač zápěstí nijak zvlášť výrazný a vnitřní ohybač zápěstí se na kost napojuje spíše dorzomediálně, mimo relevantní oblast. Augusto Haro místo této logické argumentace navrhuje jít z nějakého důvodu dolů po sauropsidním kladogramu, až k lepidosaurům (jejichž relevanci pro daný problém bych se odvážnil zpochybnit). Další alternativy, zmíněné Phillipem Bigelowem, zahrnují patologie, developmentární abnormalitu nebo genetickou mutaci. Autoři sami v práci žádné jiné vysvětlení nediskutují - nezapomeňme, jde stále o Nature, a tady nikdo nedostane více než čtyři stránky místa...
Další okruh spekulací, který by už článek roztáhl do nepříčetné délky, spojuje konkavenatora s jedním podstatně starším jménem teropodní paleontologie, beklespinaxem. Ten hodlám shrnout v samostatném článku.

Zdroje:
Ani objev obrysového peří u "neptačích" (rozuměj "stojících mimo 'Archaeopteryx node'") dinosaurů, často uváděný jako poslední hřebíček do rakve odpůrců teropodní hypotézy (Gee 1998), nebyl záležitostí jediného přelomového objevu. Lowe (1944) předpovídal objev peří u ornitolesta, bazálního maniraptora. Bakker & Galton (1974) poznamenali, že peří mohlo být u ptákům podobných teropodů značně rozšířené; v Bakkerově populárně naučném článku se také objevila ilustrace celofyzoida syntarza s chocholkou obrysového peří na hlavě (Bakker 1975). Thulborn (1984) předložil takovou topologii celurosaurů, ve které by obrysovým peřím musel podle pravidla fylogenetického ohraničování ("phylogenetic bracketing") disponovat nejen dromaeosauridi a troodontidi, ale i ornitomimosauři, Avimimus a tyrannosauroidi. Gauthier (1986) vyjádřil své značné pochybnosti o tom, že peří by bylo unikátní pouze pro avialany (odpovídající v té době opět 'Archaeopteryx node') a o dva roky později už se objevila kniha, jejíž autor neváhal umístit peří téměř na jakéhokoli teropoda, a zkrátka se nedržel ani u peří moderního - Paulovi Predatory Dinosaurs of the World (Paul 1988). Kurzanov (1987) mezitím bez jakékoli odezvy navrhl, že útvary na posteriorní straně loketní kosti avimima by mohly být "quill knobs", dobře známé od žijících ptáků v souvislosti s letkami. Popis skutečných per s kompaktním planárním praporem a pevným rachisem od mimo-avialannch dinosaurů už byl tedy spíše jen třešničkou na dortu, kterou navíc následné studie hrozily odsunout do irelevance: Jones et al. (2000) shledali kaudipteryga být spíše nelétavým ptákem než opeřeným dinosaurem a další BANDiti se tohoto výkladu rádi chytli (Feduccia 2002; Martin 2004).
Nový teropod ze Španělska představuje objev, který dosavadní představy o vývoji peří může zrevolucionalizovat daleko víc, než Tianyulong v roce 2009 a Caudipteryx s protarchaeopterygem v roce 1998.

Kompletní, artikulovaný a dokonale prezervovaný holotyp druhu Concavenator corcovatus. Skvěle patrné jsou všechny části kostry, včetně lebky, hrudního koše a vyvýšených neurálních trnů na posledních presakrálech. (Zdroj: elpais.com)
A konečně třetí možný úvod by s "objevem roku" zacházel jako s každým jiným nově popsaným taxonem a asi nejrychleji by se dostal k věci:
Ortega et al. (2010) popsali v prestižním žurnálu Nature nový druh karcharodontosauří tetanury pod názvem Concavenator corcovatus. Už místo publikace o něčem svědčí: tabloidy Nature a Science se nijak zvlášť netají s tím, že většinu publikací odmítají beze čtení. To, co se sem dostane, jsou alespoň v oblasti paleontologie obratlovců zásadní objevy svého oboru, a je jen symbolické, že popisy kaudipteryga a tianyulonga byly publikovány v tomtéž časopise. Concavenator (doslova "hrbatý lovec") pochází ze spodní křídy - přesněji barremu - španělského souvrství Las Hoyas, výborně známého svými nálezy enantiornitních ptáků (Iberomesornis a Eoalulavis pocházejí právě odsuď). Tato lokalita patří mezi tzv. Konservat-Lagerstätten - místa s výjimečnou kvalitou fosilií, ze kterých jsou často odkrývány kompletní kostry, otisky kůže a v některých případech dokonce i měkké tkáně nebo trojrozměrně uchované fosilie. Asi šestimetrový predátor neměl s drobným iberomesornisem mnoho společného, oba však mohou být stejně významnými pro ptačí evoluci. To však není zdaleka jediná zajímavá věc na novém objevu. Svým bizarním vzhledem Concavenator dále rozšiřuje paletu dinosauří disparity (morfologické různorodosti) a umožňuje lépe pochopit evoluci karcharodontosaurů. Tito teropodi (autoři se brání použít slovo "karcharodontosaurid", které nyní odkazuje na poněkud méně obsažný klad než dříve - Benson et al. [2010] tento původní význam přesunuli na jméno Carcharodontosauria, které kromě "tradičních" karcharodontosauridů zahrnuje i nově rozeznaný rozsáhlý klad neovenatoridů) během své evoluční historie dali vzniknout jedněm z největších dinosauřích predátorů vůbec, zastoupených argentinským giganotosaurem a mapusaurem. Autoři připomínají, že až donedávna byli karcharodontosauři pokládáni za skupinu výhradně gondwanských svrchnokřídových dravců, v posledních letech se ale ukázalo, že jejich historie je komplikovanější, než se dříve myslelo, a že k prvotní diverzifikaci došlo už ve spodní křídě, přičemž její potomci osídlili také Laurasii. Holotyp druhu Concavenator corcovatus s označením MCCM-LH 6666 tvoří prakticky kompletní a výjimečně zachovalá kostra. Kladistická analýza potvrzuje jeho příslušnost mezi bazálními karcharodontosaury, což zřejmě znamená, že nejde ani o neovenatorida, ani o karcharodontosaurida. To je z definice všech tří kladů klidně možné: pokud budeme předpokládat, že neovenatoridi a karcharodontosauridi mají blíže k sobě navzájem, než mají oba k allosauridům nebo sinraptoridům, je teoreticky možná existence teropoda, který by byl blíže příbuzný karcharodontosaurovi než allosaurovi nebo sinraptorovi, ale stál by mimo klad (Carcharodontosaurus + Neovenator).

Konkavenatorova fylogenetická pozice. Nahoře časově kalibrovaný kladogram ukazující konkavenatora jako bazálního karcharodontosaurida, postavený na 50% konsenzu nejparsimonnějších hypotéz; dole striktní konsenzus s konkavenatorem jako bazálním karcharodontosaurem. (Modifikováno z blogs.discovermagazine.com/notrocketscience a Ortega et al. 2010: Supplementary Information: Figure SP1)
Pozn.: Tyto spekulace jsem napsal bez doplňkových informací, které jsou volně dostupné a ve kterých systematika dostává (jako obvykle) značný prostor. Ukázalo se, že mé původní předpoklady byly správné: striktní konsenzus 24 nejparsimonnějších stromků odkryl topologii karcharodontosaurů jako (Eocarcharia + Concavenator + Neovenatoridae + Carcharodontosauridae). 50% konsenzus, který umožňuje dosáhnout vyššího rozlišení (= méně polytomií) za cenu slaběji podložených kladů, přinesl drasticky odlišnou fylogenetickou hypotézu, ve které se Concavenator stává karcharodontosauridem: (Neovenatoridae + (Eocarcharia + (Concavenator + ostatní karcharodontosauridi))). Klad zahrnující konkavenatora a všechny odvozenější karcharodontosauridy je přitom velmi slabě podložen (54%). Obě analýzy shodně podporují neotetanury bez bazální polytomie (tzn. rozdělené pouze na celurosaury a karnosaury) a ekvivalenci kladů Carnosauria a Allosauroidea, co se obsahu týče. (Což znamená, že klad všech teropodů blíže příbuzných allosaurovi než ptákům má pod touto konkrétní hypotézou stejný obsah jako klad tvořený sinraptorem, allosaurem, jejich posledním společným předkem a všemi jeho potomky.) Carnosauria má vnitřní strukturu v podobě (Sinraptoridae + (Allosaurus + Carcharodontosauria)), přičemž klad allosaura a karcharodonosaurů s vyloučením sinraptoridů má stoprocentní podporu. V ostatních oblastech kladogramu se toho tolik neděje. Ve stromku s 50% konsenzem mají tetanury pěknou strukturu v podobě (Chuandongocoelurus + (Megalosauroidea + Neotetanurae)). V původním stromku bázi tetanur okupují nejen neotetanury a Chuandongocoelurus, ale také chronicky nestabilní Monolophosaurus, ořezaní megalosauroidi a samostatně stojící klad (Marshosaurus + (Condorraptor + Piatnitzkysaurus)), který se k megalosauroidům přidal jen s 58% podporou.
Unikátní apomorfií a snad nejzvláštnějším znakem konkavenatora jsou protáhlé neurální trny na dvou posledních posteriorních dorzálech, které formují zašpičatělý, hrbu podobný útvar. Média, která o bizarním teropodovi nezapomněla poreferovat, si nejvíce oblíbila vysvětlení v podobě zásobárny tuku. Stejná funkce byla již dříve navržena např. pro extrémně prodloužené dorzály ornitopoda ouranosaura, v kontrastu s tradičnějším vysvětlením v podobě plachty. Darren Naish s takovými teoriemi ve svém článku nesouhlasí a preferuje některou z alternativ: podle Naishe nelze vyloučit, že útvar byl částečně zanořený v tuku, ale podobné hypotézy - zvláště jsou-li prosazovány téměř dogmaticky - ignorují skutečnost, že ne všichni śuchozemští obratlovci jsou savci. Alternativní vysvětlení zahrnují termoregulační funkci (podle které by hrb zvyšoval plochu těla zvířete a umožňoval tak větší tepelné ztráty - ze stejného důvodu mají afričtí sloni své obrovské uši), komunikační úlohu v rámci smečky nebo ornamentaci, s využitím např. v pohlavním výběru. Vedoucí autor studie, F. Ortega, v komentářích pro média přiznal, že osobně nefavorizuje žádnou z těchto hypotéz. Ed Yong na svém blogu nezapomněl připomenout, že žijící savci s tukovým hrbem, jako je např. zebu indický, pro tento útvar nepotřebují podporu v podobě modifikovaných obratlů. Jaime Headden na Dinosaur Mailing Listu argumentuje podobně: hrb velblouda se neprojevuje na morfologii obratlů v příslušných místech hřbetu.

Umělecká rekonstrukce konkavenatora od Raúla Martína. Patrný je jak ostře vybíhající presakrální hrb, tak zvláštní výběžky na pažích. (Zdroj: blogs.discovermagazine.com/notrocketscience)
Gregory S. Paul na DML přišel s výhradou k ilustracím, které se po oznámení konkavenatorova objevu vynořily s opravdu obdivuhodnou rychlostí. Podle něj měl španělský karcharodontosaur hrby hned dva: neurální trny jsou totiž údajně prodloužené i na bázi ocasu, zatímco ty nad pánví ne (slovo "údajně" zde neodráží nějakou apriorní nedůvěru k Paulovým závěrům, ale jednoduše fakt, že nemám k dispozici původní studii, jen fotografie, které přetiskla média a blogy). Výsledkem by byly dva hrby, oddělené křížovou kostí. U ouranosaura je údajně podobný pokles nad pánví také patrný, i když v méně extrémní podobě. Výsledkem by bylo, že plachta, ať už termoregulační nebo čistě ornamentační, by se stala přijatelnější interpretací než tukový hrb. Heinrich Mallison však podotknul, že takové vývody jsou předčasné. Již delší dobu víme, že ocasy dinosaurů byly podstatně vyšší, než jak bývají většinou rekonstruovány - a ani ilustrace G. S. Paula zde nejsou výjimkou - a prodloužené neurální trny kaudálů se mohly vztahovat prostě k ocasnímu svalstvu. Snad jen kdyby byl jeden obratel výrazně vyšší než ostatní, šlo by předpokládat, že plachta by byla napjatá mezi ním a presakrálním hrbem, což však neodpovídá způsobu, jakým je plachta podpírána po celé své délce u spinosaura a ouranosaura. Paul s určitou jedovatostí Mallisonovi odpověděl; věcným argumentem byl v podstatě jen fakt, že první kaudály konkavenatora jsou vyšší, než u jiných teropodů. Jaime Headden poukázal na to, že je možné, že neurální trny křížových obratlů se vůbec nedochovaly, což by činilo jakoukoli diskuzi o tvaru a počtu hrbů/plachty bezpředmětnou - snad by šlo předpokládat dlouhou, zaoblenou strukturu sahající od anteriorních kaudálů k zadním hřbetním obratlům, podstatně delší a jinak tvarovanou, než špičatý hrb na dosavadních ilustracích (viz výše). Následující diskutující Headdena opravil: sakrální neurální trny zřejmě dochované jsou, ale nebyly vypreparovány kvůli měkké tkáni, která se zdá být přítomna hned na kostí kyčelní. Zdrojem jsou v tomto případě doplňkové informace ke studii, které i takový žurnál, jako je Nature, poskytuje zdarma.
Dosud však nepadla ani zmínka o tom, co by mohlo učinit konkavenatora tak převratným bodem v evoluci ptáků. Jde o sérii hrbolků na loketní kosti. Něco takového už známe od maniraptorů, včetně velociraptora, ichtyornise a některých žijících ptáků. Říká se jim "quill knobs" a jsou to útvary, pomocí kterých se brk letek upíná na kost skrze folikulární vazy (folikul = perový váček, analogický s vlasovým váčkem savčí srst). Autoři navrhují, že Concavenator disponoval stejný podobnými integumentárními strukturami vyrůstajícími z folikulu a připojenými k loketní kosti, a že hrbolky na ulně jsou skutečně homologické s "quill knobs".
To by znamenalo naprostou revoluci v našem pohledu na vývoj peří. Už jen samotná přítomnost peří u karcharodontosaura je naprosto neočekávaná, protože u podobných, velkotělých teropodů se předpokládala jeho absence. Např. z kůže karnotaura známe pouze síť drobných hrbolků různé velikosti, proloženou většími kónickými osteodermy, a i když byla potvrzena přítomnost peří u bazálních tyrannosauroidů, stále se předpokládá, že dospělci odvozených zástupců téhož kladu byli zcela bez peří (Xu et al. 2004). Tianyulong, pterosauří srst a PMNH-EHC 1/7 však opět ukazují, že alespoň fylogeneticky nejde o nic nemožného.
Skutečný problém spočívá v tom, že quill knobs spolehlivě indikují přítomnost peří moderního typu (Turner et al. 2007), tedy peří složeného z centrálního dutého ostnu a praporu, tvořeného primárními ("barbs") a sekundárními ("barbules") větvemi, navzájem vklíněnými do sebe pomocí háčkovitých útvarů, vytvářejících kompaktní profil. To, že quill knobs jsou spojeny právě s takovými pery víme naprosto jistě, protože pro toto tvrzení máme i přímou evidenci. Quill knobs např. nechybí ichtyornisovi, velmi blízkému příbuznému žijících ptáků (Neornithes). Protože ale víme z přímé evidence (otisků), že Archaeopteryx měl zcela moderní letky, a že Ichthyornis je zástupcem kladu (Archaeopteryx + Neornithes), můžeme si být přítomností těchto per zcela jisti. Podobně quill knobs na loketní kosti avimima nebo velociraptora (IGM 100/981) jsou zcela samozřejmě spojovány s moderními letkami, protože jak Avimimus, tak Velociraptor jsou zástupci kladu (Caudipteryx + Neornithes), přičemž od kaudipteryga víme o letkách z detailních otisků a u moderních ptáků je jejich přítomnost samozřejmá.

Z nádherných hi-res fotografií v Supplementary infu se těžko vybírá - zde je jedna z nejdůležitějších, zachycující protáhlé neurální trny prvních ocasních obratlů. Jejich účel je neznámý; mohly se podílet na plachtě nebo hrbu stejně dobře, jako jen poskytovat oporu ocasnímu svalstvu. (Zdroj: Ortega et al. 2010: Supplementary Information: Figure SP5)
Jenže karcharodontosauridi jsou od kladu (Caudipteryx + Neornithes) hodně, hodně daleko. A quill knobs, když nic jiného, naprosto jasně dokazují přítomnost pevného centrálního ostnu. Jenže ten je v evoluci peří novinkou: objevil se dlouho potom, co jednoduchý filament získal základový folikul, poté, co se objevilo více vláken současně, poté, co se objevilo více větví odvětvujících se z jediného centrálního vlákna a potom, co toto primitivní pero získalo planární (rovinnou) formu (Xu & Guo 2009). To všechno ale víme díky fosiliím, jejichž fylogenetická pozice je zanořená hluboko uvnitř kladu zahrnujícího konkavenatora a moderní ptáky. Už tak není evoluce peří pěkně rozprostřená po celém kladogramu: až mezi maniraptory konečně narazíme na něco jiného, než jednoduché vlákno (morfotyp 1 sensu Xu & Guo 2009), a formy, které ukazují postupnou akvizici výše zmíněných znaků (centrálního vlákna, planární formy apod.) často nacházíme u zvířat, která už prokazatelně disponují moderními pery. U žijících ptáků je tomu konec konců také tak.
Concavenator však vyvolává i další otázky. Až dosud se zdálo, že všechna zvířata vykazující moderní, obrysové peří tvoří monofyletickou skupinu. Občas do ní sice byli zahrnování i alvarezsauridi a terizinosauři, od kterých letky neznáme, ale poslední analýzy ukazují, že stojí mimo ni (Hu et al. 2009; Zanno et al. 2009). Jedinou skupinou známou z fosilního záznamu, která letky zřejmě ztratila, jsou skanzoriopterygidi. To ale není zas takový problém, jelikož žijící kivi letky ztratil také (jak uvedl v jednom ze svých článků Matt Martyniuk, peří tohoto novozélandského ratita dosáhlo bodu, kdy připomíná kompsognatidy). Pokud by ale měl Concavenator letky také, znamenalo by to, že je museli druhotně ztratit bazální celurosauři typu scipionyga, kompsognatidi, tyrannosauroidi, ornitomimosauři, terizinosauři, alvarezsauridi a samozřejmě zbytek karnosaurů, aby si je bez jakéhokoli zjevného důvodu ponechal klad (Oviraptorosauria + Neornithes). Zde je dobré připomenout, že celurosauři mají podstatně více dokladů o svém integumentu než allosauroidi. Víme ale, že Allosaurus měl na kůži staré dobré keratinové "hrbolky", což naneštěstí nestačí: není nic neobvyklého na výskytu "šupin" i peří současně, jak dokládají i moderní ptáci (Hutchinson & Allen 2009). Konec konců, i od samotného konkavenatora jsou známy otisky kůže, a ty ukazují typicky teropodní vzorek kónických bulek a šupinek. Ty ovšem zákeřnému teropodovi zřejmě nebránily zároveň disponovat peřím, byť autoři netvrdí "na rovinu", že šlo o letky. Nazývají je "výběžky kůže homologické s peřím moderních ptaků jiného než šupinového původu". Důvodem je, že šupiny (které u dinosaurů sensu stricto stejně nikdy přítomné nebyly, ale to už je ohrané) nemají folikul, který by se potřeboval upínat ke kostem - jsou čistě epidermální - a otisky letek nebyly u předních končetin nalezeny. Naprostou drobností je pak rozšíření potvrzeného výskytu peří (ve volnějším smyslu slova) z celurosaurů na neotetanury, což by, pokud nejste konzervativní paleontolog ignorující několik výše zmíněných objevů, s nikým nemělo zvlášť otřást.
DML nezklamalo ani tentokrát. Několik účastníků začalo spekulovat, co se asi ke konkavenatorovým "quill knobs" připojovalo. Někteří připomněli myšlenku Darrena Naishe, že někteří maniraptoři mohli své primární letky modifikovat do jakýchci bodlin, které by se nedaly znečistit nebo poškodit, když se ruce zapojily do lovu kořisti. Tato spekulace nemá hmotnou oporu, ale není nemožná: je naivní představovat si evoluci peří lineárně, jako proces propracovávající se od jednoduchého výběžku pokožky k asymetrickým letkám. Už ocasní bodliny psittakosaura, pokud je pokládáme za informativní, takovou představu vyvracejí. Augusto Haro dokonce tyto spekulace spojil se zvětšenými osteodermy na zadní straně krokodýlích končetin, v pokusu identifikovat jakýsi všeobecný archosauří design. Mickey Mortimer, který na rozdíl od jiných diskutujících alespoň četl kompletní článek, má však úplně jiné mínění: konkavenatorovy quill knobs vůbec nejsou quill knobs. Problematická je totiž jejich pozice. U velociraptora byla popsána jako posteriorní (Turner et al. 2007), autoři konkavenatorovy deskripce ji popisují jako posterolaterální (Ortega et al. 2010), ale M. Mortimerovi se zdá být spíše anterolaterální. Vybíhají od bicipitálního výčnělku (odvozeno od slova "biceps", v tomto případě samozřejmě znamenajícího dvajhlavý sval pažní) k plošce, kde se koketní kost kloubí s kostí vřetenní, což údajně není nijak zvlášť blízko kůži. Podle Mortimera jde spíše o intermuskulární linii, tedy jakýsi hřebínek, oddělující na povrchu kosti místa pro úpon různých svalů. Zde by vhodnými kandidáty mohly být M. flexor digitorus profundus, čili hluboký ohybač prstu, a M. adductor pollices longus (dlouhý přitahovač palce ruky). Oddělovat by je měla přesně stejná linie, na které se na konkavenatorově paži vyskytují hrbolky. Augusto Haro ale připomněl, že u krokodýlů zase stejná linie odpovídá hranici mezi M. extensor carpi radialis brevis a M. flexor ulnaris - mezi krátkým zevním natahovačem zápěstí a vnitřním ohybačem zápěstí (Meers 2003). Mickey Mortimer tuto možnost vzal v úvahu a připravil malé srovnání:

Pravá přední končetina holotypu druhu Concavenator corcovatus z laterálního (postranního) pohledu (a); detail loketní kosti z téhož pohledu (b). Šipičky ukazují na domnělé "quill knobs". Dole je pro srovnání loketní kost kondora krocanovitého, Cathartes aura. (Modifikováno z theropoddatabase.blogspot.com a blogs.discovermagazine.com/notrocketsocience)

Srovnání, které Mickey Mortimer vystavil na svém blogu. V horní části je kost loketní recentního aligátora podle Meerse (2003). Uprostřed je tentýž kosterní element konkavenatora (MCCM-LH 6666) a dole velociraptora IGM 100/981 (Turner et al. 2007). Zeleně je vyznačena ploška pro skloubení se vřetenní kostí, červeně a modře výše uváděné svaly (opět podle Meerse [2003]), vyznačené na ulně aligátora a překreslené na ulnu konkavenatora, a červené body odpovídají quill knobs u velociraptora, které jsou zřetelně umístěné na kosti jinde ve vztahu k zelené plošce. (Zdroj: theropoddatabase.blogspot.com)
Orientace artikulárního povrchu pro vřetenní kost na tomto srovnání skutečně naznačuje, že loketní kost konkavenatora byla vyfotografována spíše z anterolaterálního než posterolaterálního pohledu. To by znamenalo, že "quill knobs" jsou na špatné straně kosti, a to by zasadilo docela velkou ránu jejich identifikaci jako quill knobs.
Ke stejným výsledkům došel nezávisle na Mortimerovi a Harovi Darren Naish. Ten ve svém článku zdůrazňuje, že přítomnost quill knobs neznamená přítomnost moderního peří, ale v tomto případě spíše tuhých, krátkých integumentárních "přívěšků", které nemusely pera příliš připomínat - pouze s nimi byly homologické. (To samozřejmě možné je, ale dosud jsme neviděli quill knobs nikde jinde, než mezi dinosaury s obrysovým peřím. U terizinosaurů, tyrannosauroidů, kompsognatidů a ani ptakopánvých, kteří všichni mají strukturně podstatně jednodušší protopeří, se quill knobs nevyskytují.) Dál už ovšem Naish formuluje o něco srozumitelnějším jazykem v podstatě stejné výhrady, jaké měl Mortimer: hrbolky na ulně konkavenatora jsou na loketní kosti umístěny moc vysoko na boční straně kosti, zatímco u ptáků a dromaeosauridů jsou níže - blíž zadnímu okraji, nebo přímo na něm. Fakt, na který D. Naish upozorňuje poprvé, je nepravidelné rozmístění struktur - ptáci mají své quill knobs rozmístěny v docela pravidelných rozestupech. Prý ale nejde o hlavní protiargumenty, protože v prvotních stadiích evoluce nějakého znaku lze podobné odchylky očekávat. Nejdůležitější výhradou je, že podobné útvary se vyskytují na intermuskulárních liniích savců a u teropodů jsou zdokumentovány z holenní kosti aristosucha. Zřejmě reprezentují částečně osifikovaná místa úponu vazivových povázek.
Aby toho nebylo málo, Ville Sinkkonen na blogu předvádí úskalí teorie intermuskulární linie: argumentuje, že při rekonstrukci zvířete, které mělo z žijících organizmů zdaleka nejblíže k ptákům, není dobré na ptáky zapomenout. A ti, na rozdíl od krokodýlů, nemají krátký zevní natahovač zápěstí nijak zvlášť výrazný a vnitřní ohybač zápěstí se na kost napojuje spíše dorzomediálně, mimo relevantní oblast. Augusto Haro místo této logické argumentace navrhuje jít z nějakého důvodu dolů po sauropsidním kladogramu, až k lepidosaurům (jejichž relevanci pro daný problém bych se odvážnil zpochybnit). Další alternativy, zmíněné Phillipem Bigelowem, zahrnují patologie, developmentární abnormalitu nebo genetickou mutaci. Autoři sami v práci žádné jiné vysvětlení nediskutují - nezapomeňme, jde stále o Nature, a tady nikdo nedostane více než čtyři stránky místa...
Další okruh spekulací, který by už článek roztáhl do nepříčetné délky, spojuje konkavenatora s jedním podstatně starším jménem teropodní paleontologie, beklespinaxem. Ten hodlám shrnout v samostatném článku.
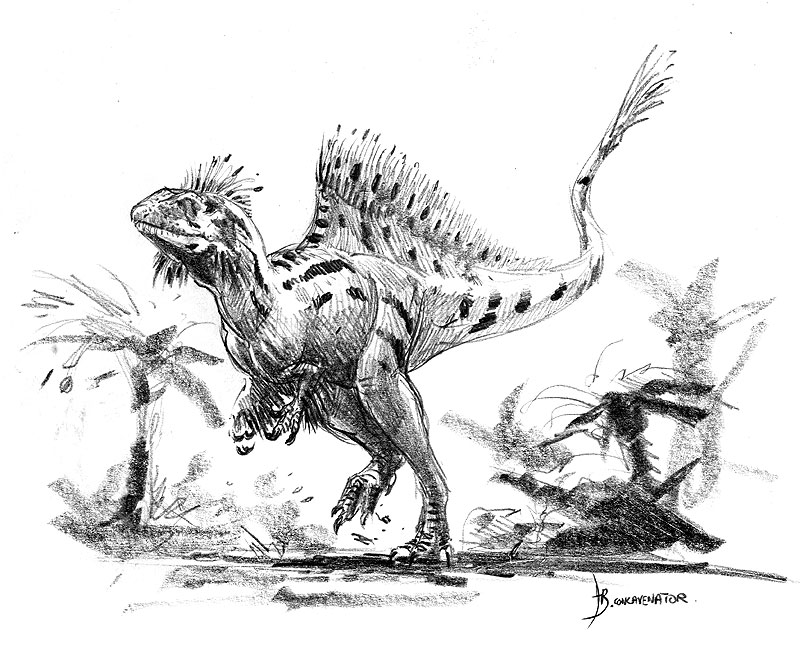
Druhá umělecká rekonstrukce, tentokrát od Alaina Bénéteaua. Pokryv těla je zde podstatně spekulativnější (pro chocholku na hlavě, pera na hřbetě a vějíř per na ocase opravdu nemáme žádné důkazy), ale rekonstrukce hrbu může být věrnější, jelikož bere v úvahu i prodloužené neurální trny prvních ocasních obratlů. (Zdroj: paleospot.com)
Zdroje:
- http://scienceblogs.com/tetrapodzoology/2010/09/concavenator_incredible_allosauroid...
- http://blogs.discovermagazine.com/notrocketscience/2010/09/08/the-shark-toothed...
- http://dml.cmnh.org/2010Sep/msg00040.html
- http://dml.cmnh.org/2010Sep/msg00041.html
- http://dml.cmnh.org/2010Sep/msg00051.html
- http://dml.cmnh.org/2010Sep/msg00069.html
- http://theropoddatabase.blogspot.com/2010/09/concavenator-feathers-becklespinax-and.html
- http://dml.cmnh.org/2010Sep/msg00071.html
- http://theropoddatabase.blogspot.com/2010/09/concavenator-part-ii-becklespinax.html
- http://dotsindeeptime.blogspot.com/2010/09/quill-knobs-vs-intermuscular-line.html
- http://dml.cmnh.org/2010Sep/msg00068.html
- Bakker, R. T. 1975. Dinosaur renaissance. Scientific American 232(4): 58–78.
- Bakker, R. T. & Galton, P. 1974. Dinosaur monophyly and a new class of vertebrates. Nature 248(5444): 168-172.
- Benson, R. B. J., Carrano, M. T. & Brusatte, S. L. 2010. A new clade of archaic large-bodied predatory dinosaurs (Theropoda: Allosauroidea) that survived to the latest Mesozoic. Naturwissenschaften 97(1): 71–78.
- Czerkas, S. A. & Ji, Q. 2002. A new rhamphorhynchoid with a headcrest and complex integumentary structures. In: Czerkas, S. J. (Ed.), Feathered Dinosaurs and the Origin of Flight. The Dinosaur Museum: Blanding, Utah; pp. 15-41.
- Feduccia, A. 2002. Birds are dinosaurs: Simple answer to a complex problem. Auk 119: 1187–1201.
- Gauthier, J. A. 1986. Saurischian Monophyly and the Origin of Birds. In: Padian, K. (Ed.), The Origin of Birds and the Evolution of Flight. Memoirs of the California Academy of Sciences 8: 1–55.
- Gee, H. 1998. Birds are dinosaurs: The debate is over. Nature Science Update [Online]. doi: 10.1038/news980702-8
- Gierliński, G. 1996. Feather-like impressions in a theropod resting trace from the Lower Jurassic of Massachusetts. Museum of Northern Arizona Bulletin 60: 179-184.
- Hu, D., Hou, L., Zhang, L. & Xu, X. 2009. A pre-Archaeopteryx troodontid theropod from China with long feathers on the metatarsus. Nature 461 (7264):640–643.
- Hutchinson, J. R. & Allen, V. 2009. The evolutionary continuum of limb function from early theropods to birds. Naturwissenschaften 96: 423–448.
- Jones, T. D., Ruben, J. A., Martin, L. D., Kuročkin, E. N., Feduccia, A., Maderson, P. F. A., Hillenius, W. J., Geist, N. R. & Alifanov, V. 2000. Nonavian Feathers in a Late Triassic Archosaur. Science 288(5474): 2202–2205.
- Kundrát, M. 2004. When did theropods become feathered? - evidence for pre-Archaeopteryx feathery appendages. Journal of Experimental Zoology (Molecular and Developmental Evolution) 302B: 355-364.
- Kurzanov, S. M. 1987. Avimimidae and the problem of the origin of birds. Transactions of the Joint Soviet-Mongolian Paleontological Expedition 31: 5-92.
- Lowe, P. R. 1944. An analysis of the characters of Archaeopteryx and Archaeornis.Were they birds or reptiles? Ibis 86: 517–543.
- Martin, L. D. 2004. A basal archosaurian origin of birds. Acta Zoologica Sinica 50: 978–990.
- Mayr, G., Peters, D. S., Plodowski, G. & Vogel, O. 2002. Bristle-like integumentary structures at the tail of the horned dinosaur Psittacosaurus. Naturwissenschaften 89: 361-365.
- Meers, M. 2003. Crocodylian forelimb musculature and its relevance to Archosauria. The Anatomical Record, Part A. 274A: 891–916.
- Ortega, F., Escaso, F. & Sanz, J. L. 2010. A bizarre, humped Carcharodontosauria (Theropoda) from the Lower Cretaceous of Spain. Nature 467(7312): 203–206.
- Paul, G. S. 1988. Predatory Dinosaurs of the World: A Complete Illustrated Guide. Simon and Schuster, New York, 464 p.
- Thulborn, R. A. 1984. The avian relationships of Archaeopteryx, and the origin of birds. Zoological Journal of the Linnean Society 82: 119-158.
- Turner, A. H., Makovicky, P. J. & Norell, M. A. 2007. Feather quill knobs in the dinosaur Velociraptor. Science 317(5845): 1721.
- Xu, X., Forster, C. A., Clark, J. M. & Mo, J. 2006. A basal ceratopsian with transitional features from the Late Jurassic of northwestern China. Proceedings of the Royal Society B: Biological Sciences 273(1598): 2135–2140.
- Xu, X. & Guo, Y. 2009. The origin and early evolution of feathers: insights from recent paleontological and neontological data. Vertebrata PalAsiatica 47 (4):311-329.
- Xu, X., Norell, M. A., Kuang, X., Wang, X., Zhao, Q. & Jia, C. 2004. Basal tyrannosauroids from China and evidence for protofeathers in tyrannosauroids. Nature 431:680-684.
- Zanno, L. E., Gillette, D. D., Albright, L. B. & Titus, A. L. 2009. A new North American therizinosaurid and the role of herbivory in 'predatory' dinosaur evolution. Proceedings of the Royal Society B: Biological Sciences 276(1672): 3505-3511.
- Zheng, X.-T., You, H.-L., Xu, X. & Dong, Z.-M. 2009. An Early Cretaceous heterodontosaurid dinsoaur with filamentous integumentary structures. Nature 458(7236): 333-336.






