pan-Aves


Zleva doprava: ara hyacintový (Anodorhynchus hyacinthinus), zdroj: flickr.com (JMJ32); Gigantoraptor a Alectrosaurus, autor Luis V. Rey

Co nám řekne 412 znaků o fylogenezi fosilních pan-avianů

    Všichni žijící sauropsidi - neboli "plazi", jak zní jejich známější, avšak nevhodnými konotacemi zatížené jméno - patří do jedné ze čtyř velkých skupin. (Mohl bych samozřejmě vybrat taky dvě, šest nebo patnáct skupin; záleží jen na tom, kudy povedu řez kladogramem.) Jde o želvy (Testudines); hady, další šupinaté a hatérie (Lepidosauria); krokodýly (Crocodylia) a ptáky (Neornithes). Ačkoli je to fakt dokonale kontraintuitivní, ptáci nejsou nejdivergentnější z těchto skupin, naopak jsou mezi sauropsidy hluboce vnoření. Krokodýli jsou blíže příbuzní ptákům než varanům, leguánům nebo třeba mezozoickým mořským plazům. Monofyletická skupina tvořená ptáky a krokodýly se nazývá Archosauria. Kromě obou žijících skupin tam patří i mnoho fosilních kladů: étosauři, poposauroidi a rauisuchidi z "krokodýlí strany", pterosauři, ptakopánví, sauropodomorfové a řada linií teropodů ze strany ptačí. Příbuzenské vztahy těchto skupin jsou otázkou, která paleontology až do 80. let značně frustrovala: do té doby jsme nemohli zkonstruovat o moc víc než jednu velkou polytomii, kde všechny tyto linie vybíhají z jediného bodu, aniž by šlo pořadí odštěpování upřesnit (tento stav ilustruje např. Charig [1976]). Revoluci přinesly – jak jinak – numerické metody k rekonstrukci fylogeneze. Gauthier (1984, 1986; Gauthier & Padian 1985) během několika let systematiku fosilních archosaurů zrevolucionalizoval a položil základy platné dodnes, třeba jen tím, že dal jménu Archosauria jednoznačnou definici.
    Obsah krokodýlí i ptačí linie archosaurů se krátce po Gauthierových průkopnických studiích celkem ustálil. Ornitosuchidi se např. brzy přesunuli z příbuzenstva ptáků blíž krokodýlům, kde se – zdá se – usadili nastálo. Zatímco na velkých měřítkách je fylogeneze ptačí linie celkem nuda (až rozeznání silesauridů v poslední dekádě s ní trochu zahýbalo), u krokodýlí linie je tomu jinak. Zvířata z ní si vůbec zaslouží víc pozornosti, než se jim dostává - obvykle se tak nějak ztrácejí ve stínu dinosaurů. O nápravu systematicky usiluje např. Bill Parker na svém blogu Chinleana. Ten je sice vymezen spíš časově (trias) než fylogeneticky, právě proto na něm ovšem krokodýlí linie archosaurů zaujímá prominentní pozici – v tomto období totiž tato zvířata měla nad dinosaury převahu (Brusatte et al. 2008). Čtenáři Chinleany se už před nějakou dobou mohli dozvědět o chystané fylogenetické monografii archosaurů, výjimečné svým rozsahem, za kterou stojí Sterling Nesbitt. A před třemi dny tato práce s téměř třemi sty stránkami konečně vyšla.

Pravá chodidla pan-avianů při pohledu zepředu či seshora. (A) Dimorphodon macronyx, pterosaur; (B) Lagerpeton canarensis, lagerpetid; (C) levá noha silesaurida Silesaurus opolensis; (D) Heterodontosaurus tucki, ptakopánvý; (E) Saturnalia tupiniquim, sauropodomorf; (F) Coelophysis bauri, teropod. Čísla odkazují na stavy znaků, měřítka odpovídají 1 cm. Pro zdroje ilustrací a vysvětlení daných znaků viz původní publikaci. (Zdroj: Nesbitt 2011: Figure 48)

Motto:
Pravda je prostě taková, že paleontologové nikdy nemají dost znaků na hodnověrnou fylogenetickou analýzu svého materiálu.

Grim & Remeš 2009
    Ano, tento citát jsem jako ukázku bezprecedentního neontologického šovinizmu vytrhl z kontextu. Autoři v něm strkají do jednoho pytle (veskrze opovrženíhodného, bezesporu) tři zcela nesouvisející věci: morfologickou fylogenetiku, "evoluční systematiku" ("pindání o históriích" sensu Zrzavý) v protikladu s moderní algoritmickou fylogenetikou a nakonec paleontologii, ostře vymezenou vůči neontologii. Myšlenka, že by i paleontologové mohli své fylogenetické hypotézy testovat, je pro Grima a Remeše nepředstavitelná ("[...] mohou důmyslně spekulovat, často i mohou mít pravdu, ale z principu nemohou své závěry o příbuznosti mezi fosilními organismy ověřit nezávislými daty"). Jinde Grim dokazuje, jak moc se morfologové oproti molekulám mýlí (taky molekulám věřím víc, ale má to své meze, jak ukazují hypotézy o skupině "Marsupionta", želvách coby krurotarzech nebo pěvcích coby nejbazálnějších žijících ptácích), aniž by bral v úvahu, že molekulární data lze využít i při určování fylogenetické pozice fosilií (viz třeba Lee et al. 2007).* Právě Nesbittova nová studie tvrzení Grima a Remeše vyvrací. Ve své datové matici kóduje autor 87 taxonů (80 v ingroup) na celkových 412 znaků, což z ní činí zdaleka nejobsáhlejší materiál, který byl kdy o bazálních archosaurech publikován. Pravda, oproti fylogenomice nic moc, na druhou stranu tomu ale není tak dávno, co neontologové chtěli řešit otázky typu velkoškálové fylogeneze metazoí maticemi řádově menšími: Nielsen (2001) měl znaků 64.

    Nadšení z Nesbittovy práce dává patřičně najevo celá archosauří blogosféra (tj. souhrn blogů píšících o archosaurech, nikoli blogů psaných archosaury). Mickey Mortimer, který obvykle cupuje pro zábavu na kousky špatně kódované datové matice, mluví o analýze v superlativech. Pravda, několik chyb také našel, ale vzhledem k rozsahu práce je jejich množství úctyhodné. Obdivný článek napsal i Mike Taylor na SV-POW. Pro srovnání: Livezey & Zusi (2006, 2007), zřejmě největší morfologická kladistická analýza všech dob, obsahovala 2954 znaků. Autoři věnovali 556 stran popisu metod, definicím znaků a mapování jejich výskytu (Livezey & Zusi 2006), aby pak o výsledcích analýzy diskutovali a porovnávali je s předchozími hypotézami na dalších 95 stranách (Livezey & Zusi 2007). Ve srovnání s tím Nesbittova analýza s více než sedmkrát menším počtem znaků zabírá celých 292 stran, přičemž v oblasti dosud navržených fylogenetických hypotéz toho má autor k diskuzi daleko méně.
    Pečlivost, s jakou Nesbitt znaky definuje a popisuje, také nemá velkou obdobu. To samé platí o metodologické bázi. Autor např. popisuje, jaké 4 kategorie znaků se rozhodl z matice vynechat: znaky nevysvětlené, nebo objasněné jen málo či nedostatečně ("nezužující se fibula a neredukované kalkaneum"); znaky, které je obtížné až nemožné interpretovat (citován je Gauthierův znak, jehož oba stavy – 0 i 1 – svým popisem neodpovídají žádnému z kódovaných taxonů); znaky, které popisují spíše tvar lebečních oken než tvar kostí, které je utvářejí; a konečně znaky, jejichž původ je tafonomický a neodráží skutečnou podobu zvířete.

pan-Aves, jeho subklady a jejich apomorfie 

Co nám Nesbitt (2011) říká o fylogenezi pan-avianů? Tohle:

Fylogeneze ptačí linie archosaurů podle Nesbitta (2011). Výsledky tady nejsou zas tak překvapivé, snad až na parafyletické herrerasaury (Staurikosaurus blíže příbuzný ptákům než herrerasaurovi). Jediné dva taxony, které mi v analýze vyloženě chybí, jsou Scleromochlus (opravdu rád bych věděl, jestli měl Benton [1999] jeho pozici správně) a Guaibasaurus. Šlo by ale zformulovat argument ve prospěch zahrnutí celé řady dalších raných dinosaurů (Chindesaurus, Panphagia, Chromogisaurus, možná i Agnosphitys a Spondylosoma), jenže prověřovat jejich fylogenetickou pozici prostě nebylo účelem Nebsittovy studie. Možná ji časem do příslušné matice dosadí Andrea Cau nebo Mickey Mortimer. (Zdroj: Nesbitt 2011: Figure 52)

    Jako nejbazálnější zástupce ptačí větve odkrývá Nesbitt (2011) pterosaury. Na tom není nic překvapivého – když už byl z analýzy vynechán Scleromochlus, těžko očekávat něco jiného. Pro klad sjednocující pterosaury s dinosauromorfy (Ornithodira) našel autor následující synapomorfie:
  1. Nerozšířené konce neurálních trnů na krčních obratlech
  2. Nerozšířené konce neurálních trnů na hřbetních obratlech
  3. Druhý prst na ruce má delší 2. prstní článek než ten 1.
  4. Zašpičatělý unguál (= prstní článek nesoucí dráp) na I., II. a III. prstu ruky
  5. Kost holenní delší než kost stehenní
  6. Příčná šířka distálního tarzálu 4 téměř shodná s šířkou distálního tarzálu 3
  7. Kloubící ploška pro metatarzál V na distálním tarzálu 4 menší než polovina jeho bočního povrchu
  8. Přední prohlubeň v astragalu (= kosti hlezenní) zredukovaná na otvůrek či chybějící
  9. Ostrý anteromediální (= dopředu a k ose těla směřující) roh astragalu ostrý
  10. Kompaktní metatarzus s metatarzály II-IV natěsnanými po aspoň polovinu své délky
  11. Osteodermy chybí
  12. Břišní žebra (gastralia) mají mezi sebou široké mezery 
(pouze jednoznačné znaky; synapomorfie platné jen pod optimizacemi ACCTRAN/DELTRAN vynechávám)
    Pro pterosaury (nebo pterosauromorfy, abych používal stejnou nomenklaturu jako autor – obsah je nicméně totožný) bylo nalezeno 13 jednoznačných synapomorfií, přičemž při hledání jejich fylogenetické pozice se autor spolehl na data od dvou nejkompletnějších bazálních zástupců (Eudimorphodon a Dimorphodon). Nesbitt (2011:238) také konstatuje, že v rozporu s tvrzením Bennetta (1996), který obhajoval pterosaury jako rané archosauriformy bez spojitosti s dinosaury, se sdílené znaky ornitodirů neomezují na zadní končetiny a znaky související s pohybem. To je celkem přirozené (konec konců, samotné jméno Ornithodira naráží na esovitě zahnutý krk a ne nohy) a je dobře, že tento argument ztrácí i zcela poslední půdu pod nohama - straší tady totiž od 19. století. Tehdy poprvé argumentaci ve stylu "podobnosti v zadních končetinách jsou jen adaptivní a souvisí s nezávisle nabytým vztyčeným postojem" (histórie znovu v akci) použili odpůrci dinosauřího původu ptáků a – jak trefně poznamenal Gauthier (1986) – otevřeli tím Pandořinu skříňku, v níž se ukrývala dinosauří polyfylie: když dinosauři a ptáci získali podobné zadní nohy nezávisle na sobě, proč by se totéž nemohlo stát s jednotlivými skupinami dinosaurů?
    Další v řadě jsou lagerpetidi. Jejich topologií se nemá cenu zabývat (uhodnout se dá i z prostého vyjmenování 3 známých zástupců). Nesbitt (2011:239) ale přichází se zajímavým poznatkem: kotník lagerpetidů je podobnější pterosaurům než dinosauriformům, nemohli by tedy lagerpetidi být bazálními pterosauromorfy? To by pěkně srovnalo časovou mezeru mezi nejstaršími dinosauromorfy (Asilisaurus, anis, 245 Ma) a pterosaury (Faxinalipterus, nor, 217–215 Ma). Hypotézu podporuje astragalus srostlý s kalkaneem, zaoblený spodní povrch druhého elementu nebo absence kalkaneálního hrbolu. Nesbittova odpověď je nicméně reakcí dobrého fylogenetika: jenže takto prostě nejúspornější hypotéza nevypadá, takže jde buď o symplezimorfie, nebo homoplazie. Jediné, co by mohlo podpořit pterosauromorfní lagerpetidy, by byly nové objevy raných pterosaurů, které by ovlivnily polaritu dalších znaků.

    Co se silesauridů týče, Nesbittovým výslovným záměrem bylo otestovat, zda jde o monofyl sesterský vůči dinosaurům (Irmis et al. 2007), nebo o sérii taxonů čím dál tím blíže dinosaurům příbuzných (Ezcurra 2006). Lépe z analýzy vyšla jednoznačně první hypotéza; Nesbitt (2011) navíc demonstroval celou řadu chyb, které Ezcurrově analýze umožnily dospět ke konfliktnímu výsledku. 2 ze 3 znaků, které eucelofyzise přibližují k dinosaurům a rozbíjejí tím monofyletické silesauridy, se nacházejí na kosti stydké, jejíž příslušnost k eucelofyzisově holotypu je ve skutečnosti nejistá (Nesbitt et al. 2007). Třetí znak je ve skutečnosti přítomný i u menších exemplářů silesaura. Po patřičném překódování dokonce i Ezcurrova matice vyhodí slabě podpořené monofyletické silesauridy. V té Nesbittově jsou podloženi čtyřmi jednoznačnými synapomorfiemi:
  1. Otvůrky pro hlavový nerv XII (podjazykový nerv) uspořádány v téměř dokonale předozadní rovině
  2. Zdrsnělý hřeben na anterolaterálních (předobočních) hranách svrchní kosti týlní
  3. Centra 3. až 5. krčního obratle delší než centra obratlů ze střední části zad
  4. Zářez pod proximální hlavicí femuru 
    Klad (Silesauridae + Dinosauria) je podpořen 13 jednoznačnými synapomorfiemi. O něco obsáhlejší klad, který zahrnuje ještě marasucha, ale už ne lagerpetidy (a který má na rozdíl od předchozího kladu jméno – Dinosauriformes) má sjednocujících znaků 9, přičemž všechny souvisejí s pánevním pletencem či zadními končetinami:
  1. Kost stydká delší než kost sedací
  2. Kloubící povrchy pro kost kyčelní a kost sedací na proximální části kosti stydké jsou odděleny žlábkem nebo mezerou
  3. Kontakt mezi kostí stydkou a kostí sedací je tenký a omezený na proximální okraje obou elementů
  4. Kloubící povrchy pro kost kyčelní a kost stydkou na proximální části kosti sedací jsou souvislé, ale rozdělené jamkou
  5. Délka kosti sedací zřetelně přesahuje délku horního okraje kosti kyčelní
  6. Přední chocholík (anterior/cranial trochanter) není oddělen od těla kosti stehenní žádnou rozsedlinou a jeho proximální okraj zaujímá vůči tělu kosti strmý úhel
  7. Přední (anteriorní) chocholíkový šelf se nachází proximálně, resp. nahoře od místa, kde se na kost stehenní připojuje sval M. caudifemoralis
  8. Proximodistálně orientovaná drážka na boční straně dolní (odlehlé) části holenní kosti
  9. Na přední straně kosti hlezenní se nachází malý dopředný výběžek menší, než je výška zadní části kosti
Silesauridi jako dinosauři? 

    Vnitřní topologie silesauridů nemůže být překvapením pro nikoho, kdo četl loňský popis asilisaura (Nesbitt et al. 2010) – je úplně stejná, s lewisuchem (= pseudolagosuchem) jako nejbazálnějším zástupcem. Zajímavější je, když Nesbitt (2011) prověřuje domněnku, kterou obhajovali Dzik & Sulej (2007) a kterou kladisticky podložili Ferigolo & Langer (2007) – že monofyletičtí silesauridi jsou nejbazálnějšími ptakopánvými dinosaury. Vynucení této topologie stálo jen 11 kroků navíc oproti nejúspornějšímu stromku (s délkou 1285 kroků). To není zas tak moc, takže bychom tuto hypotézu neměli tak rychle zavrhovat. Problémem nicméně je, že zužující se bezzubý konec spodní čelisti, formující "zobák" podobný tomu u ptakopánvých, se omezuje na odvozené silesauridy, zatímco u lewisucha/pseudolagosucha chybí. Tento taxon (tyto taxony?) má naopak typické, ze strany zploštělé a dozadu zahnuté zuby masožravců. Platí to dokonce oběma směry: zuby odvozených silesauridů se podobají zubům odvozených ptakopánvých – heterodontosauridi a Pisanosaurus, nejbazálnější ptakopánví (Butler et al. 2008), mají chrup jiný.
    Ferigolo & Langer (2007) dokonce navrhli, že by Silesaurus a Sacisaurus mohli sdílet jednu z nejnápadnějších apomorfií ptakopánvých dinosaurů, kost předzubní (predentary – odtud název "Predentata", který pro ptakopánvé užívala archaická literatura a Bakker). Dokonce i když tento sporný předpoklad Nesbitt zahrnul do analýzy, pozici silesauridů to nezměnilo.

Co vymezuje dinosaury proti ostatním archosaurům?

    Od dob Thulborna (1975) prakticky nikdo nezpochybnil – a když ano, nikdo ho už nebral vážně – že dinosauři jsou monofyletickou skupinou. Na počátku 90. let také došlo ke shodě na tom, co přesně má pojem "dinosauři" znamenat: nejmenší přirozenou skupinu, která zahrnuje jak ptakopánvé, tak plazopánvé. Došlo i ke shodě na tom, že tato skupina zahrnuje herrerasaury; což bylo předtím zpochybněno (Gauthier 1986, ale ještě Fraser et al. 2002) – herrerasauři sice dinosaury nazýváni byli, ale měli se oddělit ještě před dichotomií na ptakopánvé a plazopánvé. Problém se přesunul k tomu, jaké znaky jsou pro dinosaury apomorfické, čili které znaky jej odlišují oproti ostatním archosaurům, včetně jejich nejbližších příbuzných (Marasuchus, silesauridi):
All numerical analyses provided a core set of dinosaurian synapomorphies, many of which overlapped. However, the absence of skulls and hands in the proximal outgroups of Dinosauria has prevented the optimization of many characters at Dinosauria. The new material of basal dinosauriforms, represented by both crania and postcrania, allows further testing of dinosaurian synapomorphies.

Nesbitt 2011:13
    Výjimečná velikost Nesbittovy matice opět usnadnila hledání odpovědi. Autor nalezl celkem 12 jednoznačných apomorfií kladu Dinosauria, 8 dalších pod módem ACCTRAN (= předpokládá jediný vznik daného stavu znaku a jeho pozdější reverzi) a 6 pod módem DELTRAN (= předpokládá, že znak vzniknul víckrát nezávisle na sobě, homoplasticky). Zde uvedu opět jen první kategorii:
  1. Exokcipitály (boční týlní kosti) se nesetkávají uprostřed dna vnitrolebeční dutiny. (Také u kladu Crocodylomorpha a (Effigia + Shuvosaurus).)*
  2. Nadspánková jamka se nachází před nadspánkovým oknem
  3. Na obratlech za čepovcem z přední části krku jsou přítomné epipofýzy (= výběžky na horní straně obratlů po obou stranách neurálního trnu)
  4. Špička deltopektorálního hřebenu na konci proximální třetiny kosti pažní
  5. Kost vřetenní kratší než 80% délky kosti pažní
  6. Kloubící povrchy pro kost kyčelní a kost stydkou na proximální části kosti sedací jsou oddělené velkým, konkávním a nekloubícím povrchem*
  7. Čtvrtý chocholík v podobě ostrého hřebene
  8. Čtvrtý chocholík asymetrický, kde distální okraj svírá s tělem kosti menší úhel než okraj proximální
  9. Hřeben na holenní kosti pro úpon napřimovače stehna (cnemial crest) tvoří oblouk zahrnutý dopředu a do strany*
  10. Na zadní straně odlehlého konce kosti holenní je přítomen výrazný, proximodistálně (podélně) orientovaný hřeben*
  11. Kloubící ploška pro kost lýtkovou zabírá méně než 30% příčné šířky kosti hlezenní
  12. Kloubící ploška pro kost lýtkovou je na kalkaneu (kosti patní) vydutá dovnitř 
Znaky označené hvězdičkou byly jako dinosauří synapomorfie odhaleny poprvé. 
    Tyto znaky jsou poměrně nové – jak totiž uvádí Nesbitt (2011:246), spousta dříve navrhovaných apomorfií se po objevu silesauridů buďto přesunula na rozsáhlejší klad, nebo se jejich optimizace stala problematickou a nejednoznačnou. Na druhou stranu většina synapomorfií, navrhovaných často ještě v pre-fylogenetické době, byla Nesbittovou analýzou znovu odkryta. Autor se sám podivuje nad tím, že tyto znaky neovlivňují ani docela zásadní změny v dinosauří topologii, jako je přeskokování herrerasaurů a eoraptora mezi bazálními plazopánvými a teropody nebo rozeznání heterodontosauridů jako velice raných ptakopánvých (Butler et al. 2008).

Vlevo: předchozí hypotézy o fylogenezi archosaurů (A-J), s důrazem na jejich ptačí linii (C, F-J) a bazální dinosaury (G-J). (A) Gauthier 1984, (B) Benton & Clark 1988, (C) Juul 1994, (D) Bennett 1996, (E) Sereno 1991, (F) Benton 2004, (G) Novas 1996, (H) Irmis et al. 2007, (I) Ezcurra 2006, (J) Langer & Benton 2006. Taxony s dále rozlišitelnou (avšak nezachycenou) fylogenetickou strukturou jsou uvedeny tučným písmem. Vpravo: Nesbittova topologie nanesená na časovou osu. Vymezení jednotlivých stratigrafických stupňů je převzato z Gradstein et al. (2004) s několika modifikacemi. Černé proužky reprezentují časový výskyt "vyšších kladů", ty bílé potom možné trvání terminálních taxonů. Krátce čárkované linky reprezentují klady vzniklé před koncem spodního triasu, dlouze čárkované potom klady vzniklé před koncem anisu. Zkratky: (PERM) perm, (Ind) indu, (Olen) olenek. (Modifikováno z Nesbitt 2011: Figure 1, Figure 2, Figure 5 a Figure 58B)  

Vnitřní struktura dinosaurů

    Nesbittova analýza má dobrou šanci přimět mě uvěřit v teropodní identitu herrerasaurů. Autor dle svých slov zahrnul většinu znaků, které v Langerovi a Bentonovi (2006) odtáhly herrerasaury mimo Eusaurischia (Sauropodomorpha + Theropoda). V jeho rozboru je ale nejúspornější považovat je za konvergence raných sauropodomorfů a neoteropodů. Trochu větší problém mám s teropodním eoraptorem (přece jen, Martinez et al. 2011 a neformální reakce na jejich výsledky z DML naznačují pěkné řešení jednoho táhlého problému). A jako důkaz toho, že ani matici se 412 znaky se nedá ve všem věřit, bych uvedl parafyletické herrerasaury. Staurikosaurus má podle ní totiž blíž k ptákům než k herrerasaurovi, což činí klad Herrerasauridae (sensu Novas 1992) obsahem ekvivalentní Theropoda a klad Herrerasauria to omezuje na herrerasaura samotného. (Mimochodem, pěkná ukázka toho, že i fylogenetická nomenklatura někdy napáchá daleko víc škody než užitku.) Zajímavé je, že autor tento svůj výsledek zmíní skoro mimochodem, i když odporuje všem fylogenetickým rozborům posledních 25 let, které jsou mi známy. Zajímalo by mě, jestli je parafylie jinak obecně respektovaných skupin nějakou úchylkou Nesbittových matic: autor už takto např. popisem tawy rozbil celofyzoidy (Nesbitt et al. 2009).
    Celofyzoidi by zřejmě byli napadrť i v nové analýze, to se ale nedozvíme, jelikož z jejich tradičních zástupců je tady jen Dilophosaurus a Coelophysis osobně. Dilophosaurus má přitom z těchto dvou taxonů skutečně blíž k ptákům; to se ovšem shoduje i s některými analýzami, které monofyletické celofyzoidy skutečně odhalují, jen méně rozsáhlé než obvykle (Smith et al. 2007). Není bez zajímavosti, že velkou část vnitřní struktury plazopánvých táhne fylogenetický signál tawy: bez ní by se u báze tohoto kladu vytvořila polytomie sauropodomorfů, herrerasaura, staurikosaura a kladu (Eoraptor + Neotheropoda). Nesbittovy dinosauří výsledky jsou neuspokojivé ještě v jednom, a to mizerně rozřešené bázi ptakopánvých. Dokonce i když pomineme poněkud kuriózní pozici pisanosaura uvnitř heterodontosauridů, rozbor stále nebyl schopen určit, zda má k jedinému jakž takž odvozenému ptakopánvému (skutellosaurovi, ranému obrněnému dinosaurovi ze skupiny Thyreophora) blíž Eocursor, Lesothosaurus nebo právě heterodontosauridi. Butlerovi a spol. (2008) bych jejich topologii (Pisanosaurus + (Heterodontosauridae + Genasauria včetně lesotosaura)) věřil víc.

Divergence ptáků a krokodýlů

    Zajímavou podotázkou, kterou se Nesbitt zabývá, je načasování krokodýlo-ptačí divergence. Přestože "[i] kdyby se nenašly vůbec žádné zkameněliny, můžeme rekonstruovat fylogenezi stejně dobře" (Grim & Remeš 2009 again), asi polovina čísel udávaných webem timetree.org, jehož účelem je využít výsledky molekulárních hodin k popularizaci evoluce, je úplně mimo už při prvním pohledu do fosilního záznamu. Některé práce např. datují bazální divergenci archosaurů do doby, kdy už dinosauři 10 milionů let ovládali planetu (!) – např. Hugall et al. (2007). Už před 245 miliony let už byl na světě Asilisaurus, zástupce již celkem odvozené skupiny pan-avianů; a Nesbittova topologie vyžaduje dalších 6 uzlů, než se dostaneme k prvnímu společnému předkovi ptáků a krokodýlů (prvnímu při cestě zpět, samozřejmě). Jakýkoli odhad nižší než 245 milionů let se tím stává nereálný.

Závěr

Nesbitt sám studii uzavírá s tímto:
This analysis is far from the ‘‘last word’’ on basal archosaur relationships and, I hope, this work will encourage other basal archosauriform workers to continue to work on the relationships within the clade. [...] Even though this analysis provides the largest, most comprehensive phylogeny of basal archosaurs to date, there is a plethora of work to follow.

Nesbitt 2011:255
    Skutečně, Bill Parker, který se s autorem dobře zná a který o analýze věděl dlouho dopředu, na SV-POW napsal, že pro Nesbitta byla i tato gigantická studie jenom rozcvička, a že autor má "tunu dalších znaků"...

Potenciálně zajímavé odkazy:

Mike Taylor o Nesbittově studii
Mickey Mortimer o Nesbittově studii
Longisquama v Nesbittově matici
Cosesaurus v Nesbittově matici
Langobardisaurus v Nesbittově matici


*Přestože není cílem tohoto článku adresovat celý útok Grima a Remeše na paleontologickou systematiku, ještě jeden bod si zaslouží odpověď: "Minulost snah rekonstruovat fylogenezi nás poměrně jasně poučuje, že sebedelším civěním na „znaky” v muzeu či na pitevním stole nelze poznat, které znaky jsou informativní a které nikoli" (Grim & Remeš 2009). Souvislost s paleontologií zde naneštěstí není zřejmá, neboť i pro paleontology je běžnou strategií shromažďovat tolik dat, kolik je jen možné, a nikoli pracovat s hrstkou znaků a priori považovaných za informativní. Většina paleontologů svá data také svěřuje "moudrému software" (typu MrBayes, PAUP nebo TNT). Pravda, morfologové si na rozdíl od molekulárních fylogenetiků sami vymezují znakové stavy, což jistě otevírá prostor různým biasům, ale to "alignment by eye" taky, nemluvě o tom, že úplně první výběr znaků provádí člověk vždycky a tuto jeho roli asi bude obtížné eliminovat (Zrzavý 2006). O tom, jak vhodné jsou k rekonstrukci fylogeneze některé kategorie molekulárních znaků (mikroinverze, retropozony, mikroRNA) nebo dokonce konkrétní lokusy (v ptačí fylogenetice např. BDNF, FGB-int7, RAG-1), se už dnes vedou diskuze připomínající někdejší situaci v morfologii, a postupné odkrývání diskordancí mezi genovými a druhovými stromy tento trend zřejmě ještě prohloubí. Fenotypové znaky mají navíc rozsáhlejší prostor znakových stavů, což snižuje rizika typu přitahování dlouhých větví, a existují náznaky, že nesou silnější fylogenetický signál než molekulární data. To by vysvětlovalo, proč lze výsledky mnoha-kilobázových sekvenčních analýz zvrátit s pár stovkami morfologických znaků (např. Wiens et al. 2010).

Zdroje:

Oxalaia quilombensis tax. nov. - obří spinosaurid z brazilské svrchní křídy

    Přestože z počtu popsaných taxonů by nám to tak připadat nemuselo, je fosilní záznam dinosaurů v Brazílii poměrně skrovný. Zvláště to platí v případě non-avialanních ("neptačích") teropodů. Nepočítáme-li ichnofosilie nebo třeba izolované otisky peří (Kellner et al. 1994), je z území Brazílie známo jen 7 těchto taxonů: Spondylosoma a Staurikosaurus z triasu, jejichž teropodní identita je nicméně pochybná; čtyři klady ze spodní křídy a jeden abelisaurid z křídy svrchní. Kellner et al. (2011) nyní k tomuto výčtu přidávají další taxon, zajímavý hned z několika hledisek. Jedná se o mimořádně velkého predátora, pocházejícího z období, z nějž dosud nebyl žádný brazilský teropod popsán. Taxon pochází z lokality Laje do Coringa, spadající pod souvrství Alcântara. Jediný známý materiál byl nalezen na pláži ostrova Cajual při severovýchodním pobřeží Brazílie a tvoří jej srostlé předčelistní kosti (holotyp) a izolovaná levá maxilla (přiřazeno). Kompletností tedy zrovna neohromí, Kellner et al. (2011) v něm nicméně dokázali identifikovat hned několik autapomorfií, na jejichž základě vztyčili nové jméno, Oxalaia quilombensis (Oxalá - božstvo uctívané Afričany, zavlečenými do Brazílie v době otroctví; quilombo - osady jimi zakládané).

Holotyp taxonu Oxalaia quilombensis (MN 6117-V) při pohledu z pravého (a) a levého (b) boku. Zkratky: (alv) zubní jamka, (nfo) otvůrek pro vyživující cévy, (pm) předčelistní kost, (te) zub. Měřítko odpovídá 5 cm. (Zdroj: Kellner et al. 2011: Figure 1)

    Oxalaia je megalosauroidem - zástupcem bazální skupiny tetanur, která je sice blíž příbuzná ptákům než ceratosauři, ale stojí mimo klad Neotetanurae (tvořené vrabcem, allosaurem, jejich posledním společným předkem a všemi jeho potomky). Jde dokonce o příslušníka specifické skupiny megalosauroidů známé jako spinosauridi, jejichž nejznámějším reprezentantem je bezesporu sám Spinosaurus - rybožravý a prokazatelně semi-akvatický (Amiot et al. 2010) gigantický teropod z území dnešní severní Afriky, dorůstající délky přes 15 metrů. Pozůstatky oxaláje pocházejí ze svrchnokřídového stupně cenoman a svědčí o tom, že zvíře, kterému patřily, dosahovalo délky 12 až 14 m a hmotnosti 5 až 7 tun (Kellner et al. 2011:100), což jej celkem pohodlně usazuje mezi největší známé teropody - srovnatelných rozměrů dosahovali např. proslulí patagonští karcharodontosauridi.
    Autoři chvályhodně nabízejí v diagnóze nového taxonu i výčet autapomorfií: 1) přední konec obou srostlých předčelistních kostí je nejširší mezi 3. a 4. zubní jamkou; 2) v oblasti kostěného patra je dopředný výběžek maxilly* uzavřený mezi předčelistními kostmi velmi tenký (viz druhý z obrázků v tomto článku); 3) hned dva náhradní zuby pod 3. zubem funkčním; 4) silně ornamentovaný spodní povrch předčelistní kosti. Krom těchto znaků autoři v diagnóze uvádějí, že zuby bez vroubkování odlišují oxaláju od spinosaura a kristatusaura a že mezera mezi pátým a šestým předčelistním (= premaxillárním) zubem je kratší než u spinosaura.
    Dochovaná část premaxilly (s katalogovým označením MN 6117-V) měří na délku 20,1 cm a její šířka se v nejširším místě zřejmě pohybovala okolo 12,6 cm. Srovnáním s jinými spinosauridy (jejichž velikostní parametry publikovali Dal Sasso et al. [2005]) autoři dospěli k celkové délce lebky 135 cm, ale za oblastí sedmé zubní jamky, kde se odlomila dochovaná část kosti, toho o oxalájině kraniu moc nevíme. Kosti se navíc nevyhnula další poškození - odlomené hrany, obroušení. Přesto lze rozeznat výrazné a hluboké jamky na předním okraji kosti, které autoři interpretují jako neurovaskulární otvůrky, a otvory pro vyživující cévy nad kořeny zubů na levé straně premaxilly. Počet zubních jamek - 7, přičemž ta poslední je na obou stranách nekompletní - se shoduje se suchomimem, kristatusaurem a "angaturamou" (= čili irritatorem; že Kellner angaturamu za synonymum irritatora nepovažuje jistě vůbec nesouvisí s tím, že jí v roce '96 sám popsal). Naproti tomu lebka spinosaura, která podle Dal Sasso et al. (2005) může patřit kladu Spinosaurus aegyptiacus nebo taxonu egyptiakovi velmi blízce příbuznému, měla v premaxille jen 6 zubních jamek. První zub byl celkem malý; největší průměr měly 2. a 3. zubní jamka. Mezera (diastema) mezi 3. a 4. zubem je přítomná, ale menší než u suchomima; naproti tomu diastema mezi 5. a 6. zubem je v přechodném stavu mezi suchomimem či kristatusaurem (kde zcela chybí) a Dal Sassovým exemplářem spinosaura (kde je delší). Na rozdíl od Dal Sassovy lebky a alžírského spinosaurida (MNHN SAM 124) postrádá čenich oxaláje zúžení mezi 3. a 4. zubní jamkou; rostrum se namísto toho směrem dozadu zúžuje pozvolně.

    Při pohledu zespod vybíhají dopředu mezi předčelistní kost dva tenké výběžky, každá z jedné maxilly. Povrch kosti je v těchto místech drsnější než u jiných spinosauridů.
    Žádný zub (kromě těch náhradních, které jsou ještě skryté v čelisti) se nedochoval včetně špičky korunky. V pravé zubní řadě se korunky dochovaly v 3. a 5. zubní jamce, v levé zubní řadě ve 2. a 3. jamce. Všechny dochované části postrádají vroubkování a stejně jako u ostatních spinosauridů je jejich průřez oválný, nikoli příčně zploštělý. Pod 3. zubem se na obou stranách nacházejí dva zuby náhradní (replacement teeth), což je u teropodů vysoce neobvyklý jev. Další náhradní zuby se nacházejí pod jinými zubními jamkami, tentokrát ale vždy jen po jednom zubu na jednu jamku. Mezizubní pláty jsou výrazné mezi 2. a 3. a 3. a 4. zubní jamkou.
    Druhým exemplářem oxaláje je fragment levé čelisti s katalogovým označením MN 6119-V, obsahující dvě kompletní (1. a 2.) a jednu neúplnou (3.) zubní jamku. Dobře dochovaná je jen vnitřní (mediální) strana; ta vnější je silně obroušená. Mělká prohlubeň na vrchní straně kosti zřejmě byla částí jamky vnější nozdry.

Fotografie (a) a kresba (b) oxalájina holotypu při pohledu zespoda. Zkratky: (idp) mezizubní plát, (m) maxilla, (pm) předčelistní kost, (1-7) číslované zubní jamky. Měřítko odpovídá 5 cm. Dobře si lze všimnout úzkých výběžků maxilly, které jsou z obou stran uzavřeny předčelistními kostmi. (Zdroj: Kellner et al. 2011: Figure 2)

    V následující části studie autoři oxaláju srovnávají s jinými spinosauridy. S materiálem taxonu S. aegyptiacus není přímá komparace možná, protože ten žádnou část horní čelisti neobsahoval. Exemplář, který popsali Dal Sasso et al. (2005), má odlišný počet premaxillárních zubů (6 oproti 7); a ať už tedy jde o egyptiaka nebo ne, není totožný s oxalájou. Kellner et al. (2011) nicméně připomínají, že v ontogenezi některých archosaurů (žijících krokodýlů nebo tyrannosaura) dochází se stárnutím ke ztrátě jednoho nebo dvou zubů. Bez dostatečně velkého vzorku (na jehož nutnost Kellner [2010] upozorňoval už dříve) ale nemůže být ontogenetická proměnlivost počtu premaxillárních zubů potvrzena. To je sice naprostá pravda, ale s Kellnerovým předpokladem (bohatě zužitkovaným právě ve výše citované revizi pteranodontidů, o níž jsem na blogu také psal), že pokud není ontogenetická variabilita prokázána, můžeme se s klidem vrátit k defaultnímu stavu (že rozdíly jsou fylogeneticky informativní), by se jistě dalo polemizovat; a také se s ním polemizovalo. Rozdílný počet zubů nicméně není jediným rozdílem mezi oxalájí a Dal Sassovou lebkou: druhá fosilie vykazuje řidší rozmístění zubních jamek nebo již zmiňované zúžení mezi 3. a 4. jamkou.
    Další fosilií, s nímž autoři oxaláju srovnávají, je již zmiňovaná alžírská lebka MNHN SAM 124, kterou Taquet & Russell (1998) zahrnuli pod dříve popsaný taxon Spinosaurus maroccanus - poněkud odvážný krok, vzhledem k tomu, že žádná část materiálu se nepřekrývala s původními fosiliemi marokana. Tak jako tak toto nekompletní rostrum podle Kellnera a spol. postrádá oxalájiny autapomorfie. Od baryonychinů, podskupiny spinosauridů popsané v 80. letech z Evropy, oxaláju odlišují zuby bez vroubkování a přítomnost diastemy mezi 5. a 6. zubem.
    Co se irritatora týče, autor nejprve odmítne jeho synonymitu se "svou" angaturamou, což jej přiměje ke konstatování, že zatímco s irritatorem nelze žádné srovnání učinit, od angaturamy oxaláju odlišuje chybějící sagitální (podélný a středový) hřeben a širší čenich.
    Autoři následovně revidují spinosauridí fosilní záznam z území Brazílie. Spinosauridi se dělí do dvou skupin: na baryonychiny a spinosauriny, přičemž obě jsou z největšího jihoamerického státu známy. Cristatusaurus a Suchomimus reprezentují první skupinu a Kellner et al. (2011) připomínají, že může jít o synonyma. Spinosaurini jsou sjednoceni nevroubkovanými zuby, znakem, který je v rámci (neptačích) teropodů unikátní. První pár premaxillárních zubů je u nich menší a mezery mezi zubními jamkami širší. Brazilským zástupcem je Irritator (a, jste-li Kellner, i Angaturama), jehož morfologie je nicméně podle autorů na tolik odlišná, že by mohla reprezentovat třetí, dosud neznámou skupinu spinosauridů. Oxalaia by do ní nepatřila - ta je daleko podobnější africkým taxonům, konkrétně Dal Sassově spinosaurovi (Dal Sasso et al. 2005) a marocké lebce, údajně patřící S. maroccanus (Taquet & Russell 1998). Kellner a spol. zmiňují, že Medeiros nahlásil z místa výskytu oxaláje dva typy spinosauridích zubů. Jeden z nich (morfotyp 2) dobře odpovídá oxaláje; ten druhý je buď opotřebovaný první typ, nebo - což bylo vysvětlení preferované Medeirosem - zastupuje jiný klad spinosaurinních teropodů.
    V závěru autoři konstatují, že Oxalaia vykazuje zjevné znaky spinosauridů a s vysokou pravděpodobností se jedná o spinosaurina blízce příbuzného výše zmiňovaným africkým taxonům. To s sebou nese docela zajímavé biogeografické implikace, které ovšem Kellner et al. (2011) nechávají zcela nedotčené. Je-li mi přitom známo, v cenomanu už byla Afrika a Jižní Amerika kompletně oddělená, takže by si tyto vztahy zasloužily nějaké vysvětlení. (Možná ale jen neznám nějaký pevninský most, jehož existence je tak dobře podložená, že nikomu nestojí za to se faunálními výměnami mezi oběma kontinenty zabývat.) Vzhledem k tomu, že Oxalaia vykazuje hned několik jedinečných odvozených znaků a její stratigrafický i geografický výskyt se nepřekrývá s jinými spinosauridy, splňuje hlavní kritéria pro rozeznání nového taxonu. (Na tomto místě opět citován Kellner [2010], v případě oxaláje je ale argument pro distinkci o dost silnější než u geosternbergie a dawndraka.) Oxalaia podstatně zvyšuje velikostní diverzitu brazilských teropodů a dokazuje, že spinosauridi byli zastoupeni i v raně-cenomanských pobřežních oblastech Jižní Ameriky.


*Svou nechuť používat pro maxillu její zavedený český název - "horní čelist" - jsem plánoval vysvětlit už několikrát, zatím se tak ale ještě nestalo. Důvod je následující: zatímco u ploché obličejové části lebky, která je charakteristická pro lidi, dává smysl omezit "horní čelist" na tuto jedinou kost, u protáhlých lebek většiny ostatních obratlovců ne. V herpetologických textech se často můžeme setkat s výroky, jako "kosti horní čelisti - premaxilla, maxilla, jugál...", čili důsledně česky "kosti horní čelisti - mezičelist, horní čelist, kost jařmová...". Evidentně nevhodné a zmatečné. (A to už nemluvím o "mezičelisti", která mi vždy evokovala nějakou exotickou strukturu mezi horní a dolní čelistí. Chápu sice, že pojem vychází z toho, že je tato kost při pohledu seshora uzavřená mezi oběma maxillami, ale "předčelistní kost" je daleko méně zavádějící název; ač používaný méně často.) Pravdou je, že zdaleka ne vždy se do horní čelisti započítávají i kosti tak daleko vzadu, jako je jugál nebo dokonce kost čtvercová. Ale ani zdroje, které to nedělají (v případě dinosaurů např. Holtz & Brett-Surman 1997), se nemohou vyhnout tomu, že horní čelist spousty amniot se skládá minimálně ze dvou párových kostí (maxilly a premaxilly), a to ještě tehdy, pokud to nekomplikuje např. rostrál rohatých dinosaurů.

Zdroje:

Hoacin není jediný žijící pták s drápy na křídlech

    Jednou z mých "pet peeves"* je často opakované tvrzení, že ze všech žijících ptáků má jedině hoacin chocholatý (Opithocomus hoazin) na křídlech drápy. V představách lidí, kteří toto tvrzení opakují, z jakéhosi záhadného důvodu jeden jediný amazonský pták stále zachovává pleziomorfii z archeopterygových časů. Už na tom by mělo být něco divného: hoacinova fylogenetická pozice je sice mimořádně problematická (oříškem se ukázala být jak pro Sibleyho a Ahlquista, tak i pro moderní molekulární analýzy s gigantickými matricemi), zároveň ale nikdo nezpochybňuje, že jde o taxon hluboce vhnízděný mezi moderními ptáky (Neornithes).
Hoacin chocholatý - jediný majitel drápů na křídlech mezi žijícími dinosaury? Ani náhodou... (Zdroj: photos.travelblog.org)

    Ve skutečnosti jsou drápy na křídlech u žijících ptáků velice rozšířené a vlastně úplně normální. A ano, zde mám na mysli skutečné drápy - rohovinové pochvy na špičkách posledních prstních článků. Spousta ptáků krom toho má na křídlech i jiné ostny, jejichž původ je ovšem exotičtější a - na rozdíl od "pravých" drápů, které jsou skutečným dědictvím teropodních dinosaurů - jde o struktury odvozené, nikoli primitivní. O těchto "ostruhách" (spurs) napsal sérii článků Darren Naish (tady, tady a tady) a v souvislosti s xenicibisem se objevily i na tomto blogu. Většinou jde o rohovinou obalené kostěné výčnělky záprstí nebo zápěstních kůstek (Rand 1954). Hned dvě takové ostruhy má např. čája bělolící (Chauna chavaria - kamišovití, vrubozobí), a to na alulárním a velkém metakarpálu. Seznam taxonů, u nichž se vyskytují pravé drápy, nabízí např. Stettenheim (2000) a na blogu jsem ho citoval už několikrát. Brzy jsem navíc zjistil, že především ve starší literatuře byl výskyt drápů poměrně frekventovaným tématem. Úplně první práce (řekněme z 1. poloviny 19. století) sice nerozlišovaly mezi skutečnými drápy a záprstními ostruhami, už Jeffries (1881) ale toto pochybení napravil a ukázal, že i pravé drápy jsou poměrně rozšířené. Zajímavé je, že vzhledem k užití vernakulárních jmen nebylo pro pozdější autory snadné rozšifrovat, u kterých ptáků že to vlastně Jeffries drápy našel. V jeho šlépějích nicméně pokračoval např. P. L. Sclater (ano, ten, po němž se jmenoval kasuár Sclaterův), který nahlásil přítomnost drápů od kondora havranovitého (Coragyps [tehdy Cathartes] atratus) a rovněž od čáji (Chauna), která tím kombinuje pravé (primitivní) drápy s ostruhami (Sclater 1886).
    Wetmore (1920) dále prozkoumal 12 "rodů" rorýsovitých (Apodidae, tehdy "Micropodidae") a pouze u jednoho z nich drápy chyběly - u salangany (Collocalia). Zaujalo jej totiž, že Jeffries zaznamenal dráp u rorýsovitých ze Starého světa, zatímco u peruánského rorýse ostnitého (Chaetura pelagica) měl chybět. Wetmore toto pozorování nepotvrdil, odhalil ovšem docela zajímavý fakt - že z příbuzných klechovitých (Hemiprocnidae) nemá křídelní drápy žádný zástupce. S důkladným rozborem přítomnosti drápů přišel Heilmann (1926) ve své známé knize The Origin of Birds. Ta je sice nechvalně známá tím, že na dalších padesát let po svém vydání zastavila debatu o původu ptáků, v mnoha směrech jde nicméně o obdivuhodné dílo. Heilmann byl zřejmě jedním z prvních, kdo podotkl, že drápy na křídlech jsou mezi žijícími ptáky zcela běžná věc. U mláďat kachen, hus, luňáků, rybáků, tenkozobců, ouhorlíků, břehoušů a lysek zaznamenal drápy jak na prvním (alulárním, embryologicky II.), tak na druhém (velkém, embryologicky III.) prstu, často ovšem pouze na tom prvním. Dospělí ptáci s drápem na alulárním prstu podle jeho údajů zahrnují husy, kachny, labutě, supy, jestřáby, orly a dokonce i některé pěvce (Passeriformes). Příležitostné drápy na velkém prstu Heilmann (1926) nahlásil i od všech běžců - pštrosa, nandu, emu, kiviho i kasuára.
    Nejpodrobnější rozbor tématu zřejmě provedl Fisher (1940), z jehož práce jsem přejal většinu výše uvedených citací. Fisher založil svůj rozbor na celkem 2004 (!) ptačích kůžích a tělech naložených v lihu, zastupujících různá ontogenetická stadia celkem 227 "rodů". (Jak podotkl David Marjanović, kdo ví, kolik "rodů" by to dělalo dneska - historicky ptačí systematika jasně směřuje ke "splitterství", tedy rozdrobování.) Drápy na alulárním a/nebo velkém prstu zaznamenal celkem u 51 "rodů" a celkem 225 "druhů". Taxony, které drápy disponovaly, prezentoval ve formě tabulky, kde uvádí rovněž věk daných exemplářů. Na alulárním prstu byly drápy běžné u potáplic (Gaviiformes), brodivých (Ciconiiformes), vrubozobých (Anseriformes), hrabavých (Galliformes), dravců ("Falconiformes", dnes zřejmě Falconidae a Accipitriformes), "krátkokřídlých" ("Gruiformes" - bez kompletní Fisherovy studie těžko říct, které taxony to asi byly...), dlouhokřídlých (Charadriiformes) a sov (Strigiformes). Ne vždy samozřejmě drápem disponovali všichni zkoumaní zástupci dané skupiny. Dráp na velkém prstu byl podstatně vzácnější: jeho pravidelný výskyt Fisher (1940) zaznamenal jen u mláďat vrubozobých a všech ontogenetických stadií hoacina, zatímco alespoň příležitostně se objevoval (v souladu s Heilmannovými údaji) i u jiných forem. Drápy nebyly ani jednou nalezeny u potápek (Podicipedidae), měkkozobých (Columbiformes), trogonů (Trogonidae), srostloprstých (Coraciiformes), šplhavců (Piciformes), klechovitých (Hemiprocnidae) a nakonec ani u žádného z 241 exemplářů 68 "rodů" pěvců.
    Důležité jsou i závěry, ke kterým Fisher dospěl. Tak především tento autor jasně zformuloval něco, co výzkumy ptačích drápů naznačovaly už desítky let: že jejich přítomnost nemá žádný taxonomický význam. (To je samozřejmě obecné pravidlo, nikoli celá pravda. Wetmore [1920] např. argumentoval, že s objevem drápů u rorýse ostnitého zmizel další argument pro rozdělování rorýsovitých na "měkkoocasé" [Apodinae] a ostnoocasé [Chaeturinae] - a měl pravdu, takto zřejmě základní dichotomie rorýsovitých skutečně nevypadá.) Fisher se ovšem zabýval i jinými aspekty výskytu drápů: ukázal, že častější a lépe vyvinuté bývají u mláďat než dospělců (přestože i z tohoto pravidla budou nejspíš výjimky - Wetmore [1920] např. u svého rorýse zaznamenal drápy až v docela pozdní fázi ontogeneze) a že mohou a nemusejí být přítomny dokonce i u různých jedinců téhož "druhu".

    Darren Naish v prvním z článků výše zmiňované série o ptačích kyjích, bodcích, ostnech a drápech rozvádí, u jakých ptáků se drápy příležitostně vyskytují na velkém (embryologicky III.) prstu: krom obligátního hoacina, Fisherem zmiňovaných vrubozobých a Heilmannem zmiňovaných ratitů jde i o plameňáky (Phoenicopteridae).
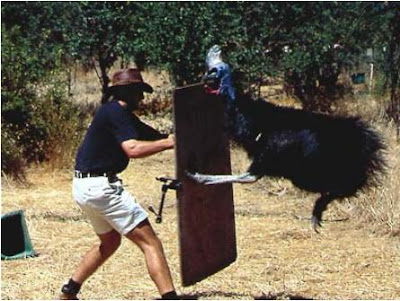
    Celkem zajímavý je příběh kasuářího drápu: Stettenheim (2000) uvedl, že tito nelétaví ptáci mají na velkém prstu ruky velký a zakřivený dráp, který používají jako zbraň. D. Naish tento fakt okomentoval s tím, že žádný jiný zdroj tento fakt neuvádí a vzápětí dodal, že jde zřejmě o zmatený odkaz na dráp II. prstu na noze, který skutečně jako zbraň slouží. To se zdá být celkem pravděpodobné (když se nad tím člověk zamyslí, je těžké si představit kasuára, jak útočí pomocí svého drápu na křídle; oproti tomu obrázky těchto ptáků vyskakujících do vzduchu nohama napřed jsou dobře známé), takže v článku, kde jsem toto Stettenheimovo tvrzení zopakoval, už jsem provedl opravnou editaci. Na druhou stranu zůstává faktem, že na kasuárově velkém prstu se skutečně dráp nachází. Dokládá to třeba ilustrace Parkera (1888), kterou už jsem na blogu jednou přetisknul (a znovu je k vidění pod tímto odstavcem). Dráp na konci křídla mají také nejbližší žijící příbuzní kasuárů, emuové, a to opět na prstu III (Fisher 1940; Scott 1996). Emuům nicméně žádný jiný prst nezbyl, takže jinde by ho mít ani nemohli.
Kasuáří dráp na velkém prstu - byť jako zbraň zřejmě neslouží (contra Stettenheim 2000), patrný je více než dobře. Tato ilustrace pochází z Parkerovy studie, zabývající se výskytem drápů na křídlech běžců (Parker 1888). (Zdroj: wikimedia.org) 

Dráp na III. (a jediném) prstu pštrosa emu (Dromaius novaehollandiae). Obrázek je součástí série fotografií, které víceméně kompletně zachycují pitvu tohoto ptáka pod vedením Matta Wedela, známého svým podílem na blogu SV-POW. (Zdroj: drvector.blogspot.com)

    Ten nejironičtější fakt nicméně teprve přichází - pod již zmíněným článkem D. Naishe jeden komentátor upozornil na to, že drápů si musel všimnout každý, kdo se kdy jen trochu pečlivěji podíval na pečené kuřecí křídlo. To potvrdil i Matt Taylor a stejný fakt byl několikrát zmíněn i na Dinosaur Mailing Listu. Zatímco většina článků a publikací nás nutí hledat křídelní drápy u exotického amazonského endemita, má jej ve skutečnosti i ten nejběžnější pták, jakého si vůbec dovedeme představit a s jakým se setkáváme téměř každý den - Gallus gallus f. domestica, čili kuře.
    Z dosud uvedeného by tedy mělo být zřejmé, že drápy na alulárním prstu nejsou vůbec žádnou vzácností - naopak, jde o celkem běžný znak, který bývá (slovy D. Naishe) pouze "tu a tam selektivně ztracen". Dráp na velkém prstu je podstatně vzácnější, z jeho fylogenetické distribuce ale můžeme určit, že jde opět o zděděný znak kladu Neornithes - obvyklý je totiž u ratitů a mláďat vrubozobých, čili zástupců dvou nejbazálnějších skupin moderních ptáků (Palaeognathae a Galloanserae, v tomto pořadí). Podle Naishe je ztráta křídelních drápů charakteristická především pro tzv. "vyšší pozemní ptáky" (higher landbirds) . Složení tohoto kladu se v některých analýzách (např. Johansson et al. 2001) skutečně pěkně kryje s ptáky, u nichž Fisher drápy nezaznamenal: patří sem pěvci a několik jim příbuzných kladů, včetně leskovcovitých a příbuzenstva (Galbulae), datlů a příbuzných (Pici), sov (Strigiformes), svišťounů (Apodiformes), trogonů (Trogonidae), srostloprstých (Coraciiformes) a snad i kukačkovitých (Cuculidae). Fisherovy závěry o absenci křídelních drápů u pěvců se nicméně dočkaly revize, když Baumel (1953) nahlásil jejich přítomnost na křidélkách dospělé samice vrány hispaniolské (Corvus leucognaphalus). Drápy byly zakřivené a poměrně dobře vyvinuté; s délkou 3,2 mm na levém a 6,2 mm na pravém křídle. Tato studie byla zajímavá ve více ohledech. Přestože např. D. Naish uvádí, že narozdíl od mezozoických ptáků a neptačích teropodů nemají křídelní drápy moderních ptáků kostěnou oporu, Baumel (1953) explicitně zmiňuje "unguální falanx" (= poslední prstní článek, tvořící kostěný základ drápu), a dokonce přiznává, že u "usušeného" exempláře bylo přítomno právě jen toto kostěné jádro, zatímco rohovinová pochva chyběla. Samozřejmě nelze vyloučit chybnou interpretaci onoho útvaru, ačkoli je otázkou, o co by potom šlo, když ne o dráp - o ostruhu jistě ne, ty vyrůstají z jiných míst. Nedávná studie (Wiley 2006) každopádně cituje Baumelův poznatek bez jakéhokoli skepticizmu.

    Když tedy hoacin není jediným ptákem, který má na prstech křídel drápy, nemůže být aspoň jediným ptákem, který je k něčemu využívá? Stettenheim (2000) např. po výčtu ptačích skupin, u nichž jsou drápy přítomny, jedním dechem dodává, že u naprosté většiny ptáků jde jen o nefunkční, rudimentární útvary. Dobře známo oproti tomu je, že mláďata hoacinů své drápy využívají k lezení po stromech a jako dospělí ptáci je ztrácejí. (Méně známým faktem je, že některým hoacinům drápy v dospělosti znovu narostou. Strahl [1988] uvádí, že z 24 dospělců zkoumaných mezi roky 1982 a 1985 disponovalo drápy 8 jedinců, takže možná nejde o jev nijak vzácný. Ani dospělí hoacinové, který dráp mají, jej už ale nevyužívají: na to, aby lezli po stromech, jsou příliš těžcí.) Mladí hoacinové nicméně nejsou jedinými neornity, kteří své teropodní dědictví aktivně využívají. Stettenheimovo tvrzení o kasuárech je nejspíš nutné ignorovat (viz výše), přesto ale zůstává jeden další dobrý kandidát: turakové (Musophagidae). Jejich mláďata využívají křídelní dráp úplně stejným způsobem, jako mláďata hoacina (zmíněno např. tady nebo tady). Byly zde i dohady, že někteří forusracidi měli drápy hypertrofované a využívali je při lovu (viz starší článek o titanisovi), ty ale byly založené na chybné interpretaci kulového kloubu na karpometakarpu (Chandler 1994).

Ruce (či křídla, chcete-li) recentního pštrosa dvouprstého (Struthio camelus; vlevo) a svrchnojurského taxonu Archaeopteryx lithographica (vpravo). Drápy jsou samozřejmě patrné na obou z nich. (Modifikováno z Abel 1911: Fig. 4 a Fig. 5)
Drápy na rukou různých ptáků podle Fishera (1940). (A) Pagophila - racek, (B) Cygnus - labuť, (C) Rallus - chřástal, (D) Lophortyx - křepel, (E) Cathartes - kondor, (F) Archaeopteryx. (Zdroj: scienceblogs.com/tetrapodzoology)

    To vše ovšem neznamená, že hoacin nemá žádný znak, který by jej (zdánlivě) spojoval s druhohorními ptáky a neptačími dinosaury namísto ptáků moderních - on ho má, jen nijak nesouvisí s drápy. Hoacin chocholatý je jediným ptákem, který se líhne s nesrostlým karpometakarpem. Karpometakarpus - nepřesně nazývaný také záprstí - se skládá nejen ze záprstních kostí neboli metakarpálů, ale i distálních (tělu vzdálených) kostí zápěstních. Srůst těchto elementů, ačkoli zpočátku neúplný, se v ptačí evoluci objevil relativně brzy - už u konfuciusornitidů. Právě proto je téměř nemožné, aby hoacinova ontogeneze reprezentovala skutečný původní stav, pleziomorfii. Není celkem pochyb, že poslední společný předek všech žijících ptáků (Neornithes) se líhl s plně srostlým karpometakarpem, a že hoacinův návrat k "archaickému" stavu je ve skutečnosti vysoce odvozeným znakem, autapomorfií. Asi po 10 týdnech od vylíhnutí hoacinovi metakarpály srostou do jediné kosti tak, jak se tomu u jiných ptáků děje už v embryonální fázi.
    Naneštěstí tento rys - a samozřejmě dobře vyvinuté drápy - způsobil, že v paleornitologických studiích bývá hoacin s železnou pravidelností jediným ptákem, který se objevuje vedle archeopteryga nebo neptačích dinosaurů (Livezey & Zusi 2007). Začal s tím zřejmě Parker (1891), který dokonce hoacina explicitně označil za "plazího ptáka" (reptilian bird), ale pokračovali v tom ještě Feduccia et al. (2005). Tato tendence naneštěstí vybízí k víře - a pokud ne záměrně, pak takovou interpretaci nelze nikomu vyčítat - že hoacin má s ranými ptáky a jejich "plazími" předky jakýsi exkluzivní příbuzenský vztah, který s ním žádný jiný žijící pták nesdílí. Někteří staří autoři takovou možnost navrhli zcela otevřeně: podle Headleyho (1895) je hoacin "žijící fosilií" z doby předtím, než ptáci dosáhli "vyšší[ho stupně] organizace". To je naprostý omyl - jak pěkně vysvětluje např. Dawkins (1982), z žijících ptáků nemůžeme sestavit žebřík, kde by taxony stojící níže byly blíže příbuzné "plazům" než taxony stojící nahoře. Evoluce tvoří stromky, ne žebříky. Kdybychom se od libovolného žijícího ptáka vydali po evoluční trajektorii zpátky, nutně bychom se dostali daleko dříve ke společnému ptačímu předkovi než k archeopterygovi nebo libovolnému "plazovi".
    Přesto nás takové představy strašily do nedávné minulosti: Livezey & Zusi (2007) upozornili na to, že iluzorní výjimečnost hoacinových drápů vedla několik autorů (Feduccia 1980; Olson 1985) k výrokům, že tento taxon pochází z "kořenů" Neornithes. (Podobné mlžení, ze kterého se ani s největší námahou nedá vymáčknout jasná fylogenetická hypotéza, je pro tyto autory typické). Dnes už se takové názory (doufám) nevyskytují, stále se ale objevují v každém populárně-naučném článku. Hoacin bývá popisován až v poetických pojmech; údajně působí "pradávně" nebo "prehistoricky". Vážně? Jistě, pták ze sousedství to zrovna není, ale kdyby čtenáře daný článek neseznámil s "unikátními" drápy (které má ve skutečnosti každé kuře), těžko by někoho napadlo takový přívlastek použít. O to víc zamrzí, že tento nesmysl se vyskytuje i v jinak poměrně kvalitních zdrojích (např. BirdLife International 2007); právě proto je nutné jej vyvracet.


*No co, předevčírem jsem si vyposlechl přednášku, kde se slajdovalo pravítkem a bylo pro nás čelindžkou, abychom něco nemisnuli.

Zdroje:

Qiliania graffini tax. nov. - protipták z čínské spodní křídy

    Rok 2011 sice zatím patřil sauropodům, ale ani ptáci si nevedli špatně. Mnoho nových objevů zaznamenala hlavně skupina Enantiornithes, která kombinovala archaické dinosauří znaky s mnoha evolučními novinkami, souvisejícími především s aktivním letem (křidélko, jamka ramenního kloubu posunutá na boční stranu lopatky). Už jsme zaznamenali rozsáhlou revizi skupiny z pohledu lebeční anatomie (O'Connor & Chiappe 2011) a spoustu informací přinesla i redeskripce rapaxavise, jednoho z nejlépe zachovaných a zároveň nejbazálnějších enantiornitů (O'Connor et al. 2011). O obou článcích už jsem na blogu stručně psal.

    Nyní přichází další protipták: Qiliania graffini byl popsán ve studii vedené Ji Shu'Anem, autorem, který se podílel prakticky na všech velkých čínských objevech souvisejících s opeřenými dinosaury (Ji & Ji 1996; Ji et al. 1998). Nový objev tentokrát nepochází z žádného z "profláklých" souvrství, přestože do úplné neznámosti má také daleko. Spodnokřídové souvrství Xiagou, o kterém je řeč, se nachází v severozápadní Číně (pánev Changma, provincie Gansu) pochází z období aptu (před 125 až 112 miliony let) a jeho dosud známé avifauně dominují pozůstatky bazálního ornituromorfa Gansus yumenensis. Mezi 100 fosilními kostrami, které zde dosud byly nalezeny - a které, ač bývají neúplné, často uchovávají i otisky měkkých tkání - se prokazatelně nacházejí i pozůstatky enantiornitů. Ji et al. (2011) nyní rozeznal v těchto protiptačích pozůstatcích nový taxon, známý dosud ze dvou nekompletních, částečně artikulovaných koster - jednu tvoří kompletní levá noha s částí příslušného pánevního pletence; druhá se skládá z téměř kompletní pravé nohy. Oba exempláře nesou znaky diagnostické pro klad Enantiornithes, abstrakt studie nicméně neuvádí, jaké autapomorfie (jedinečné odvozené znaky) podpořily vztyčení nového taxonu. Ji et al. (2011) nicméně slibují, že unikátní trojrozměrné dochování fosilií - naprostá většina spodnokřídových fosilií ptáků je polámaná a bez patrné hloubky - poskytuje nový vhled do protiptačí anatomie, evoluce a diverzity.
    Qilianii bych snad ani nevěnoval samostatný článek, kdybych měl po ruce jen abstrakt, další informace ale poskytuje na svém blogu Andrea Cau. Jako obvykle se týkal fylogenetiky a jako obvykle Cauova propracovaná Megamatrice vyhodila jiný výsledek, než předložili původní autoři. Ji et al. (2011) totiž qilianii vykryli v blízkém příbuzenství evropského iberomesornise, zatímco Megamatrice ji shledala uvnitř gobipterygidů jako sesterský taxon bohaiornise. Vysvětlení? Podle Caua na tom není nic překvapivého: pokud protiptáci dosahovali aspoň zlomku rozmanitosti ptáků moderních, musela mezi nimi být homoplazie (konvergentně získané znaky) silně rozšířená. Vzpomeňme konec konců, jak překvapivé morfologické homoplazie odhalila kontroverzní analýza Faina a Houde'a (2004), nebo třeba na potápky (Podicipediformes) a potáplice (Gaviiformes), u nichž je homoplastická povaha vzájemné podobnosti plně akceptována.

A. Cau se se svou Megamatricí tentokrát vrhl do vod enantiornitů: Qiliania je druhá odzdola. (Zdroj: theropoda.blogspot.com)

Zdroje:

Teropodí čich a jeho změny v ptačí evoluci

    Tento článek je sice inspirován konkrétní studií (zmíněnou na jeho konci), zabývá se ale spíš nedávnými pokroky v daném problému obecně. Tímto problémem jsou čichové schopnosti teropodů a zejména to, jak se měnily během ptačí evoluce. Je zjevné, že čich nám může říct mnoho o potravních návycích a ekologii, a několik autorů se proto pokusili určit, jak dobře byl u teropodů vyvinut.
Čich teropodů, jak jej na základě velikosti čichových laloků (stanovené zřejmě z CT skenů) zkvantifikovali Zelenitsky et al. (2011; viz konec článku). Hodnoty pro jednotlivé uzly jsou spočítány na základě nejvyšší úspornosti. Během maniraptoriformní evoluce čichové schopnosti teropodů rostly, až se zhruba u společného předka eumaniraptorů (žijících ptáků a deinonychosaurů) "zastavily". V této míře přečkaly až ke společnému předkovi pygostylianů (žijících ptáků a konfuciusornitidů), od nějž dál počaly opět vzrůstat. Barvy větví (doplněné vlevo dole legendou) zobrazují polohu daného taxonu vůči regresní přímce: teropodi na černých a fialových větví mají horší čich, než bychom očekávali, na větvích zelených a červených naopak čekají lepší "čichači". Červené větve jsou zjevně unikátní pro moderní ptáky; dokonce ani jejich nejbližší příbuzný Ichthyornis takto vyvinutým čichem nedisponoval. Pro další legendu viz popisek v obrázku. (Zdroj: palaeoblog.blogspot.com)

    Jména těchto autorů se budou v článku poměrně často opakovat. Mezi ty, kteří se otázkou zabývají nejdéle a nejsystematičtěji, patří i Zelenitsky a Therrien, jenž se podíleli na studii, která se snažila dopátrat evolučního původu tzv. "etmoidního komplexu", popsaného původně od tyrannosaura a posléze objeveného u celé řady dalších teropodů (Ali et al. 2008). Ten sestává z elementu s tvarem jakéhosi žlábku, na nějž je zepředu napojena jakási mediánní přepážka a který se seshora a zboku připojuje k prefrontálům (kostem předčelním) a kostem čelním a zezadu pak k orbitosfenoidům ("malým křídlům kosti klínové"). Přepážka má pak nahoře posazený jakýsi dorzální plát. Ali et al. (2008) se pokusili určit, kterým elementům žijících archosaurů (krokodýlů a ptáků) tyto struktury odpovídají. Zjistili, že žlábkovitý útvar je homologický s přední částí tzv. planum supraseptale, který dobře známe od krokodýlů a částečně i od embryonálních ptáků (kde občas osifikuje a stává se součástí drobných orbitosfenoidů); zatímco přepážka a ní usazený plát odpovídá ptačímu mezetmoidu. Autoři navrhli nové anatomické názvosloví k popisu tohoto komplexu (kombinující paleontologickou tradici a nově zjištěné homologie), především se ale zamysleli nad tím, co nám nový objev říká o čichových schopnostech teropodů. Soudě podle žijících archosaurů, čichové laloky mozku musely být usazeny ve "žlábku" (nyní nazývaném sfenetmoid) hned za přepážkou (mezetmoidem). To jejich velikost podstatně omezovalo - některé předchozí odhady, kladoucí laloky pod kosti čelní, předčelní a slzné, přitom počítaly s tím, že u tyrannosaura by laloky mohly přerůst jeho mozkové hemisféry (Brochu 2000).
    Zelenitsky a Therrien se k teropodímu čichu velmi rychle vrátili, a to v práci, o níž jsem svého času napsal na starou verzi blogu (Zelenitsky et al. 2008). Ti využili celkem dobře prokázaného faktu, a to konkrétně souvislosti mezi velikostí čichových laloků a rozlišovací schopností čichu. (Slovo "rozlišovací" zde má svůj význam. Čichové laloky nijak nesouvisejí s citlivostí čichu, tedy tím, jak slabý pach je ještě zvíře schopno zachytit - na to má vliv spíš plocha, a tím pádem i počet buněk, čichové sliznice. Na druhou stranu velikost čichových laloků přímo koreluje s tím, jak podobné pachy bude zvíře ještě schopné rozlišit.) Autoři poté porovnali průměr čichového laloku s průměrem mozkové hemisféry (přičemž u maniraptoriformů obě hodnoty "natvrdo" stanovili z dochovaných mozkoven, zatímco u zbytku teropodů museli počítat s tím, že mozek nevyplňoval celou mozkovnu). Poté sestrojili graf závislosti výsledných hodnot na hmotnosti teropodů a proložili jím regresní přímku. Nad ní se umístili tyrannosauridi a dromeosauridi, což indikovalo, že jejich čich byl na teropody nadprůměrný a spolu s dříve prokázaným stereoskopickým viděním šlo o jasnou adaptaci na dravý způsob života. Čich oviraptorosaurů a ornitomimosaurů byl naopak podprůměrný, což mohlo souviset s jejich všežravostí. Velké očnice a zrakové laloky ukazují, že se tito dinosauři více spoléhali na zrak než na čich. Čichové rozlišovací schopnosti ceratosaurů, karnosaurů, bazálních tyrannosauroidů, troodontidů a archeopteryga (jediného zástupce avialanů v analýze) byly průměrné. Zajímavé je, že stereoskopické vidění troodontidů naznačuje, že i tato skupina se začínala čím dál tím víc spoléhat na zrak, aniž by ovšem ztratila ancestrálně dobrý čich.
    Co se ptáků týče, Zelenitsky a spol. poupravili hypotézu, že se čichové schopnosti v ptačí evoluci postupně zhoršovaly s tím, jak se zvyšovala závislost na zraku (Rogers 1999; Franzosa 2004). K tomuto typu posunu jistě dojít muselo, ale podstatně později, než se citovaní autoři domnívali: čich raných avialanů a jejich nejbližších příbuzných z řad deinonychosaurů byl ještě velmi slušný, takže ke změně "architektury mozku" mohlo dojít až někdy při vzniku orniturinních ptáků. To nepřímo podporuje závěr, že raní avialani typu archeopteryga nebo konfuciusornise neuměli dobře létat - nepotřebovali totiž modifikovat "mozkový plán" svých nelétavých předků.

    Zelenitsky a Therrien ale nebyli jediní, kdo se tématu věnovali. Zabýval se jím např. i Larry Witmer, paleontolog a anatom známý svou účastí v diskuzi o původu ptáků (Witmer 1991, 1999, 2002), především však svými studiemi dinosauřích mozkoven (Holliday & Witmer 2008) a jejich pneumatizace (Witmer 1990; Witmer & Ridgely 2008). Teropodí čich analyzoval spolu s Ryanem Ridgelym ve studii o tyrannosaurovi, publikované v předminulém roce (Witmer & Ridgely 2009). Pomocí CT skenů dokázali zrekonstruovat velkou část tyrannosaurova čichového ústrojí: ukázali např., že dutina pojímající jeho čichový trakt (svazek axonů vycházejících z tzv. mitrálních buněk čichových laloků, který lalok propojuje s dalšími oblastmi mozku) byla ve srovnání s jinými teropody neobvykle krátká a široká; širší, než bylo třeba k pojmutí obou párových traktů a mozkových cév. Witmer a Ridgely také potvrdili závěry Aliho a spol. ohledně malých čichových laloků; ukázali ale, že oblasti, které Brochu (2000) považoval za vyplněné čichovými laloky, byly vyplněny čichovou sliznicí. Souhlasili také s tím, že sfenetmoid a mezetmoid obklopovaly svazky čichových nervů a cév, které vedly od čichového laloku, jenž zasahoval až do oblasti sfenetmoidního prstence. Celkově Witmer & Ridgely (2009) souhlasili s tím, že i s novými, přesnějšími rekonstrukcemi čichových laloků platí původní závěr, že tyto orgány byly větší než u jiných celurosaurů či velkotělých teropodů (Franzosa & Rowe 2005; Zelenitsky et al. 2008). Naznačili také, že pokud čichová sliznice vyplňovala u tyrannosaura stejnou část nosní dutiny, jako tomu je u žijících archosaurů, muselo jít o mimořádnou plochu. Takový závěr by docela pasoval k tomu, co začíná ukazovat řada neontologických studií, ať už zaměřených na genomiku (Steiger et al. 2008) nebo etologii (Nevitt 2008; Roth et al. 2008) - že i žijící ptáci se na čich spoléhají více, než se dříve předpokládalo.
Rekonstrukce čichového aparátu tyrannosaura, kterou sem dávám proto, že je hezky barevná. Zeleně jsou vyznačeny části nosní dutiny, které byly vyplněné čichovou sliznicí (zatímco Brochu [2000] by do nich strčil čichové laloky). Skutečný rozsah čichového laloku je vyznačen modře. Šipka ukazuje, jak vzduch putoval dýchacími cestami - od nosní dutiny (aw) přes choanu, vnitřní nozdru, až po hltan. Pachový signál naopak putoval skrze čichový region nosní dutiny (olf) až k čichovému laloku mozku (ob). Další zkratky: (cer) mozková hemisféra, (oevc) kanál pro spojovací žíly (v. emissariae), otevírající se do očnice, (otc) dutina pro čichový trakt, (ovc) očnicový žilní kanál, vybíhající z čichové oblasti nosní dutiny do očnice. (Zdroj: Witmer & Ridgely 2009: Figure 6)

    Nyní Zelenitsky, Therrien, Witmer a Ridgely (spolu s ještě jedním autorem, A. McGeem) spojili síly a na ptačí evoluci se zaměřili o něco důkladněji. Ví se, že čichové schopnosti žijících ptáků jsou velice proměnlivé, zatímco o čichu bazálních ptáků (myšleno mimo Neornithes, čili korunní skupinu) neznáme skoro nic. Obecně  se předpokládá (jak je patrné i z výše uvedeného), že čich se zhoršoval spolu s tím, jak se - díky letu - zdokonaloval zrak a prostorová orientace. Aby tuto hypotézu otestovali, zaměřili se Zelenitsky et al. (2011) na relativní velikost čichových laloků, stanovenou jako praktické měřítko pro jemnost čichu. Tento parametr autoři analyzovali u 157 terminálních taxonů žijících i fosilních ptáků a neptačích teropodů. Výsledky? V raných fázích evoluce maniraptoriformů se čich zlepšoval. (Maniraptoriformes jsou nejmenším kladem, který zahrnuje jako "imitátory pštrosů" ze skupiny Ornithomimosauria, tak žijící ptáky. Dále sem spadá i zbytek avialanů, deinonychosauři, oviraptorosauři, alvarezsaur[o]idi a terizinosauři) Během toho, co Zelenitsky et al. (2011) nazývají "přesun od neptačích teropodů k ptákům" (k čemuž v jejich podání evidentně došlo u báze kladu Avialae, tedy se vznikem prvních zvířat blíže příbuzných žijícím ptákům než deinonychosaurům), tento trend ustrnul a k podstatnějším změnám čichových schopností nedocházelo. Po tomto přechodu se ovšem velikost laloků opět začala zvyšovat, což je jasně vidět u raných avialanů a dokonce i prvních moderních ptáků. V pozdějších fázích evoluce neornitů zůstávala velikost čichových laloků stabilní a až u odvozených skupin neoavianů (= všech žijících ptáků bližších vrabci než kachně) došlo k určitému snížení.
    Závěry nové studie jsou překvapivé, ne-li přímo revoluční: důležitost čichu během ptačí evoluce vzrůstala, nikoli klesala. Všimněme si, že tento závěr je v dobrém souladu s výše citovanými studiemi žijících ptáků, které rovněž ukazují, že jejich čich není jakýmsi přežitkem z dob, kdy dinosauři ještě nelétali. Zelenitsky et al. (2011) jsou ovšem ještě dál a snaží se vypátrat, k čemu byl výkonný čich ptákům dobrý. Docházejí k závěru, že dokonalejší čich prvním neornitům umožňoval ve srovnání s bazálními ptáky efektivněji shánět potravu nebo zdokonalit navigaci. Možná tedy Zelenitsky a spol. narazili na další faktor, podílející se na ohromném evolučním úspěchu moderních ptáků. Snad byl právě dokonalejší čich důvodem, proč klad Neornithes přečkal vymírání na přelomu křídy a paleogénu, kdežto hesperorniti, protiptáci nebo létající dromeosauridi ne.

Zdroje:

Podivuhodný příběh Waltera Rothschilda a kasuára Sclaterova


Darren Naish se se svým blogem Tetrapod Zoology stal v podstatě žijící legendou. Přestože je specializací paleozoolog, na Tetrapod Zoology (nebo Tet Zoo, jak bývají stránky familiárně nazývány) se paleontologie s neontologií mísí s neuvěřitelnou lehkostí. Krom toho, že Darrenův profesionální výzkum během několika minulých let změnil způsob, jakým se díváme na některé vymřelé pan-aviany (za azhdarchidní ptakoještěry plížící se po zemi ve stylu dnešních čápů marabu vděčíme právě jemu), má tento autor i ohromující znalosti žijících čtvernožců. O ně se se svými čtenáři rád dělí v dlouhých, na detaily bohatých článcích, které navíc často shlukuje do obsáhlých cyklů - jako byl např. ten o kyjích, bodcích, ostnech a drápech na křídlech žijících ptáků nebo čerstvě uzavřená dvacetidílná (!) série o netopýrovitých. Autor se ale neomezuje jen na čtvernožce živé i vymřelé - s chutí píše i o těch, na jejichž existenci vědci nevěří (= kryptidech) a sem tam si i nějakého vymyslí (jako třeba i zde zmíněné nelétavé pterosaury). Tet Zoo začínalo na stejné platformě, kde nyní píšu i já, a představuje jeden z mých největších blogovacích vzorů. V roce 2007 se přesunulo do prestižní sítě ScienceBlogs (kde stále daleko vyčnívá nad ostatní blogy) a má dokonce i vlastní knihu.

Se svolením Darrena Naishe zde nyní předkládám překlad jednoho z mých (a nejen mých) dlouhodobě nejoblíbenějších článků na Tet Zoo. Přečíst jste si jej mohli ještě na staré verzi Tetrapod Zoology a podruhé v letošním únoru, pod názvem "Walter Rothschild and the rise and fall of Sclater's cassowary"

(Zdroj: en.wikipedia.org)

    Lord Walter Rothschild (1868–1937) (na obrázku z wikipedie se cvičenou zebrou [už to o něčem vypovídá - pozn. překl.]) byl dost možná nejvýznamnějším a nejplodnějším sběratelem zoologických exponátů v pozdním 19. a raném 20. století. Během práce ze svého domova a současně muzea v Tringu v hrabství Hertfordshire (které je dodnes sídlem Rothschildova muzea i jeho sbírek ptáků, nyní pod správou Natural History Museum) dokázal nashromáždit bezkonkurenční sbírku doslova tisíců kusů hmyzu, ptačích i savčích kůží, ptačích vajec a dalšího materiálu. Rothschild se zdál projevovat zvláštní - pokud ne přímo fanatický - zájem o několik specifických skupin zvířat, mezi nimiž byly rajky (viz Fuller 1995), blechy a kasuáři.
    S ne méně než 62 vycpanými exempláři tvoří Rothschildova kolekce jednu z největších sbírek kasuárů na světě. Tyto exponáty se očividně ukázaly být pro tringské správce dosti problematickými: Whitehead & Keates (1981) napsali, že "z nějakého důvodu se lord Rothschild rozhodl nechat si vycpat ne méně než 65 [sic] těchto velkých kasuárů, jako kdyby je zamýšlel v budoucnu vystavit. Tyto kusy představují jedinečnou sbírku a poněkud tvrdý oříšek pro kurátora". Kolekce byla dále rozšířena o četné kůže a kosterní exempláře! Rothschild požadoval, aby se vycpávání kasuárů věnovala zvláštní pozornost, a jen jediného taxidermistu - muže jménem Doggett - považoval za schopného uspokojivě se s úkolem vypořádat. Za vycpání jednoho kasuára platil Rothschild Doggettovi 30 liber, sumu, kterou Rothschildovi kurátoři a příbuzní považovali za mimořádně vysokou. Následkem toho Walterův bratr Charles Rothschild tuto dohodu v roce 1908 zkrátil. Více než 60 vycpanin nakonec stálo přes 2000 liber.
    Rothschild tyto exempláře studoval s cílem sepsat monografii, která by popsala všechny rozličné variety. Považoval za nezbytné založit své popisy na živých jedincích a ne jen na kůžích, takže sesbíral všechny živé kasuáry, které mohl chovat a pozorovat. Jen málo bylo zveřejněno o tom, jak se Rothschild a jeho perzonál o ptáky staral; je nicméně známo, že je nedržel ve skleníku ani žádném jiném vyhřívaném prostředí. Jednou napsal, že "[m]á nosnice přežila 6 anglických zim bez tepla" (M. Rothschild 1983:103 - zde ukázána obálka knihy Miriam Rothschildové [vida, další cvičené zebry]; jde o nepostradatelnou četbu pro každého, koho zajímá Rothschild nebo jeho sbírky).
(Zdroj: scienceblogs.com/tetrapodzoology)

    Vzhledem k tomu, že kasuáři jsou známí svou útočností, možná se ptáte, jestli nebyli zdrojem nějakých potíží. [Pozn. překl.: Darren svůj článek od roku 2006 neupdateoval; jinak by mohl zmínit jako zajímavost, jaké riziko kasuáři nedávno představovali pro záplavami stižené obyvatele Queenslandu. I když si odmyslíme jistou senzacechtivost, kasuáři spolu s pštrosem dvouprstým zůstávají jedinými ptáky, kteří prokazatelně zabili člověka (Naish 1999).] Opravdu byli částečnou příčinou toho, proč Rothschildův otec Nathaniel přistupoval ke sbírce svého syna tak tvrdě. V roce 1888 jeden z kasuárů volně se potulujících Tring Parkem zaútočil na Nathanielova koně. Rothschild nicméně své dílo skutečně dokončil a v roce 1900 publikoval konečnou kasuáří monografii (W. Rothschild 1900). V této více než štědře ilustrované práci pojmenoval několik nových "druhů" a "poddruhů" na základě zbarvení krku nebo utváření laloků - znaků, které jsou dnes považovány za příliš proměnlivé na to, aby tvořily spolehlivý základ pro taxonomii.
    Přestože by se mohlo zdát, že jeho výzkum kasuárů nyní došel naplnění, Rothschild se sbíráním ptáků pokračoval a začal shromažďovat tajnou sbírku živých exemplářů. Ačkoli jeho otec koupi dalších jedinců zakázal, Rothschild svým sběratelům napsal, aby v zasílání živých kasuárů pokračovali; místo toho, aby je rovnou poslali do Tringu, je ovšem měli držet na bezpečném místě.
    Rothschild však měl temné tajemství: vydírala jej jeho bývalá milenka, zámožná aristokratka. S podporou svého manžela tato žena časem - v roce 1931 - donutila Rothschilda prodat lepší část jeho ornitologické sbírky Americkému muzeu přírodní historie (American Museum of Natural History) za 225 000 dolarů - asi kolem dolaru za exemplář [!]. Vyděračka zůstala v anonymitě, ale Miriam Rothschild (1983) prohlásila, že si je vědoma její pravé totožnosti. Navzdory této obrovské a zničující ztrátě se Rothschild nedokázal odtrhnout od svých kasuárů a všechny exempláře - vycpaniny, kůže i kostry - byly ponechány v Tringu. Zde dnes představují neocenitelnou sbírku s fascinující historií.

(Bývalá) záhada kasuára Sclaterova

    Kasuár Sclaterův - Casuarius philipi - bylo pojmenování, které Rothschild v roce 1898 udělil jedinci drženému v zajetí v londýnských Zoological Gardens. Dopraven sem byl z Kolkaty a pojmenován byl na počest Philipa L. Sclatera (který je vzpomenut také v názvu jednoho "poddruhu" kasuára přilbového, Casuarius casuarius sclateri*). Zajat byl zřejmě na Nové Guineji a zmínku si zasluhuje pro pozoruhodnou morfologii, kterou od něj Rothschild popsal. Podle jeho názoru byl dokonce kasuár Sclaterův ze všech kasuárů nejodlišnější.
    Když tento "druh" v roce 1898 popisoval, domníval se Rothschild, že navzdory hnědému peří šlo o plně vzrostlého jedince, který se tím pádem svým zbarvením všem ostatním kasuárům vymykal. Peří sice v průběhu let zčernalo stejně jako u každého jiného kasuára, další rysy ale zůstávaly vysoce neobvyklé. Nejenže se jeho peří strukturou více podobalo emu než kasuárovi, ale v oblasti stehen a ocasu dorůstalo takové délky, že jej pták tahal po zemi.
    Přilbice kasuára Sclaterova byla popsána jako přechodná mezi stavem známým od kasuára jednolaločného (C. unappendiculatus) a od kasuára Bennettova (C. bennetti) - zploštělá v přední části, avšak zezadu připomínající val nebo násyp. [Kresbu kasuára jednolaločného od D. Naishe jsem pod tímto odstavcem nahradil fotografií téhož taxonu - pozn překl.] Jeho volání údajně "připomínalo hluboký řev" a nepodobalo se jiným kasuárům. Spodní části krku byly "třešňově karmínové" a tvářové laloky (Rothschild na ně odkazoval jako na "lícní kapsy", ačkoli si nejsem jistý, zda je tento termín skutečně vhodný) se v nafouknutém stavu zbarvily do levandulově modré barvy. Jediný krční lalok byl oblý, zploštělý, modrý v dolní části a třešňově červený nahoře (W. Rothschild 1900).

Kasuár jednolaločný, Casuarius unappendiculatus. (Zdroj: wikimedia.org)

    Nejpozoruhodnější byly nicméně jeho silné a krátké nohy: přestože šlo o velkého ptáka (Rothschild jej popsal jako "obra"), jeho tělo bylo blíže zemi než u kteréhokoli jiného velkého kasuára - výškou se vyrovnal malému kasuárovi Bennettově. Rothschild dokonce přirovnal kasuára Sclaterova k pachyornisovi, tlustonohému ptákovi moa, který se stal slavným pro svou velikost v kombinaci s podsaditou, krátkonohou tělesnou stavbou. To vysvětluje obrázek, který jsem použil úplně nahoře: kasuár Sclaterův je nalevo (z W. Rothschilda [1900]), napravo je potom kresba pachyornise, jemuž byla dětinsky přidána kasuáří přilbice. [Obrázek jsem přetiskl pod následujícím odstavcem - pozn. překl.] Jakkoli fascinujícím se toto zvíře jeví, dnes je pokládáno za jedince C. unappendiculatus, ačkoli někteří autoři jej považují aspoň za zástupce odlišného "poddruhu" (Howard & Moore 1991). Navzdory Rothschildově jistotě o zvláštní povaze kasuára Sclaterova byly jeho neobvyklé proporce a bizarní peří údajně důsledkem individuální variace nebo způsobu života, který pták vedl v zajetí. Stejně to zní, jako by šlo o mimořádného ptáka.
    Největší Rothschildovou chybou v jeho pracích o kasuárech byla zřejmě ochota rozeznat nový "druh", kdykoli narazil na kasuára se zvláště výrazným barevným vzorem na hlavě a krku. Tento sklon k rozeznávání rozmanitých "druhů" na základě drobných rozdílů dokonce komentovali ještě za jeho života i Rothschildova švagrová a zaměstnanci (M. Rothschild 1983) a jeho kritika by tedy neměla být považována za záležitost unikátní pro dnešní osvícenou éru.

Kasuár Sclaterův vyobrazen nalevo, včetně modrých "lícních kapes", dvoubarevného laloku a atypické přilbice; napravo "pokasuářený" moa Pachyornis. (Zdroj: scienceblogs.com/tetrapodzoology)

*C. casuarius sclateri byl v roce 1878 pojmenován jako nový "druh". Rothschild (1900) na něj odkazoval jako na kasuára D'Albertisova. [Pozn. překl.: fotografii typového jedince - nyní mimochodem rovněž vystaveného v Tringu - jsem z článku vynechal. Salvadori (1878) jej popsal pod názvem Casuarius sclateri; do C. casuarius jej jako "poddruh" přesunul sám Rothschild (1900). Ten také poznamenal, že jde o největšího zástupce celé skupiny kasuárů přilbových. Matoucí je, že i tento "poddruh" si někdy uzurpuje jméno "kasuár Sclaterův" (např. zde), které zde spolu s D. Naishem používám pro "kdysi-druh" C. philipi.]

Zdroje:
  • Fuller E 1995 The Lost Birds of Paradise. Shrewsbury, UK: Swan Hill Press
  • Howard R, Moore A 1991 Howard and Moore Complete Checklist of the Birds of the World 2nd edition. London: Christopher Helm
  • Rothschild M 1983 Dear Lord Rothschild: Birds, Butterflies and History. Glenside, PA: Balaban Publishers
  • Rothschild W 1900 A monograph of the genus Casuarius. Transact Zool Soc Lond 15: 109–48
  • Whitehead PJP, Keates C 1981 The British Museum (Natural History). London: P. Wilson
  • [Zdroje citované překladatelem:
Zajímavé jsou i některé komentáře k původnímu článku, a to jak na staré, tak na nové verzi Tet Zoo. Současný odborník na systematiku kasuárů Richard Perron - jehož web jsem citoval výše - např. ostrým tónem zopakoval, co již v článku napsal D. Naish, uvedl ale zajímavý fakt, a to že Rothschildův přístup k taxonomii nebyl na tehdejší dobu svým "splitterstvím" nijak výjimečný. Podotkl také, že tvar přilbice může mít spojitost s nadmořskou výškou obývaného prostředí, což by mohlo vysvětlovat jeden z "unikátních" rysů C. philipi. Debata zabrousila i k viktoriánskému stylu sběratelství - 225 000 dolarů při ceně 1 dolaru na exemplář představuje opravdu hodně exemplářů, a jak se v diskuzi ukázalo, k vyhubení mnohých zvířat stačily sbírky podstatně menší.

Zřejmě s nejlepším komentářem ale přišel na staré verzi blogu Mike Taylor. Toho vedlejší dějová linka s vydíráním jen rozptylovala od hlavní zápletky - doufal, že Rothschilda vydíral tajný kasuáří fetišista, jehož jedinou podmínkou bylo Víc Kasuárů! Taylor se zjevně domníval, že všepohlcující vášeň pro kasuáry se v těch dobách šířila rychleji než zombie virus v Resident Evil, a že byla právě tak nakažlivá.

Daemonosaurus chauliodus tax. nov. - podivný bazální teropod z Nového Mexika

    V posledních dvou letech jako by se roztrhl pytel s bazálními teropody a plazopánvými vůbec. Začít by šlo s předloňským taxonem Tawa (popsali Nesbitt et al. 2009), který představoval první osvěžení v jinak špatně známé fázi teropodí evoluce - té fázi, která předchází vzniku neoteropodů. Od raných plazopánvých, jaké reprezentuje např. Eoraptor, je to k prvním neoteropodům (jako třeba celofyzisovi) ještě docela dlouhá cesta. Tawa představuje na této cestě jistý mezník - podle autorů má dokonce svou morfologií blízko k ideálnímu "mezičlánku" mezi herrerasaury a celofyzoidy. Snad nejpřekvapivější ale bylo, že přidání tawy do fylogenetické analýzy odhalilo tradiční celofyzoidy jako parafyl, sestávající z taxonů čím dál tím bližších pokročilejším teropodům. Pravdou je, že tento kontroverzní závěr další studie nepotvrdily. Zato se ukázalo, že Nesbitt a spol. měli naprostou pravdu se směskou herrerasauřích a neoteropodích znaků. Jen díky tomu mohl např. Andrea Cau ve své "megamatrici" odkrýt tawu jako bazálního herrerasaura (stojícího mimo herrerasauridy), zatímco Martinez et al. (2011) ji shledali být nejbazálnějším zástupcem monofyletických celofyzoidů.
    V roce 2010 následoval popis nového herrarasaura, pocházejícího z již legendárního argentinského souvrství Ischigualasto. Sanjuansaurus Alcober & Martinez 2010 (popis byl mimochodem publikován v novém, kompletně open-access žurnálu ZooKeys) sice neměl tak závažné fylogenetické implikace, byl ale zajímavý z hlediska evoluce a ekologie raných dinosaurů. Opět potvrdil dnes již nevyvratitelný fakt, že diverzita plazopánvých dinosaurů byla už v nejranějším svrchním triasu velmi slušná, což posouvá první větvení v dinosauří evoluci dál do minulosti. Ukázal také poněkud překvapivou skutečnost, že velcí dinosauří predátoři byli běžnější ve starším, karnském Ischigualastu než v pozdějším Los Colorados z období noru. Autoři jej použili k obhajobě modelu rané, komplexní evoluční radiace dinosaurů (jaký zastávali Brusatte et al. 2010) v protikladu s hypotézami, přisuzujícími značný význam vymírání na přelomu karnu a noru (Langer et al. 2009).
    A konečně na začátku letošního roku dorazil zde na blogu už několikrát zmiňovaný Eodromaeus (popsali Martinez et al. 2011), který odsunul eoraptora do bazálních (guaibasauridních) sauropodomorfů a sám jej vystřídal na atraktivní pozici raného teropoda. Šlo by dokonce říct, že vystřídal tawu na její pozici "mezičlánku", protože v analýze publikované spolu s popisem zaujal přesně stejnou pozici, v jaké byla Tawa na kladogramu Nesbitta a spol: mezi herrerasaury a neoteropody.

Fylogenetická pozice démonosaura ve dvou různých analýzách. Andrea Cau a jeho nepublikovaná "megamatrice" odkryla nový taxon jako vůbec nejbazálnějšího plazopánvého, ležícího mimo klad Eusaurischia (teropodi + sauropodomorfové). Všimněme si i dalších zajímavých výsledků - silesauridů jako ptakopánvých (a to včetně 245 milionů let starého asilisaura - jak daleko do minulosti by něco takového posunulo vznik dinosaurů!), eodromea bazálnějšího než herrerasauři (Martinez et al. 2011 to viděli naopak) nebo eoraptora, který sice zůstává sauropodomorfem, avšak již ne guaibasauridem (jak jej odkryli Martinez et al. 2011). Sues et al. (2011), autoři démonosaurova popisu, oproti tomu nabízejí poněkud konzervativnější stromek. Eoraptor v něm, podobně jako ve starších studiích, zaujímá bazální pozici v rámci teropodů, přičemž Tawa a Daemonosaurus vyplňují mezeru, která se klene mezi ním a neoteropody. Jelikož vnitřní struktura neoteropodů je velmi blízká tomu, co odhalili Nesbitt et al. (2009) - včetně kontroverzních parafyletických celofyzoidů, soudím, že Sues a spol. stavěli přímo na jejich matrici. (Modifikováno z theropoda.blogspot.com a en.wikipedia.org)

    A teď, sotva tři měsíce po eodromeovi, přichází další raný teropod s nárokem změnit dosavadní představy o evoluci skupiny. Dinosaur se skvěle zvoleným názvem Daemonosaurus chauliodus (popsali Sues et al. 2011) pochází z proslulého "Ranče duchů" (Ghost Ranch) v novomexickém souvrství Chinle, konkrétně pak z lokality zvané Coelophysis Quarry. Toto souvrství si již v pan-avianní paleontologii udělalo jméno s chindesaurem (problematickým plazopánvým dinosaurem; snad raným herrerasaurem), dromomeronem (lagerpetidem - zástupcem vůbec nejbazálnější známé linie dinosauromorfů) nebo třeba již zmíněnou tawou. Všechny tyto taxony nicméně pocházejí z Hayden Quarry, zatímco Daemonosaurus byl nalezen v Coelophysis Quarry. Abstrakt (jediná část studie, kterou mám k dispozici) uvádí čtenáře do základů problematiky: nejstarší teropodi se objevují v argentinském karnu a rychle prodělávají radiaci, až do přelomu triasu a jury (o nějakých 17 milionů let později) ale zůstává jejich fosilní záznam velmi řídký a neumožňuje plně pochopit evoluční historii skupiny. Daemonosaurus by v tom samozřejmě měl být nápomocen. Z abstraktu vyplývá, že spolu s tawou a eodromeem si i tento taxon činí zálusk na překlenutí morfologické mezery mezi herrerasaury a neoteropody. Andrea Cau zase jednou přináší další informace a uvádí, že podle Suese a spol. by měl být Daemonosaurus ještě bazálnější než Tawa. Ještě blíž bázi teropodů jsou pak herrerasauři a Eoraptor.
    Autoři dále považují démonosaura za pozůstatek z "prvotní radiace" dinosaurů, a jelikož se vyskytuje ve vrstvách datovaných do samého konce triasu (spolu s podstatně pokročilějším, neoteropodním celofyzisem), domnívají se, že ve své době už představoval jakýsi anachronizmus. Abstrakt (a znovu Andrea Cau) upozorňuje i na několik zvláštností. Jednak jde o pleziomorfie, které skutečně dokládají, že nový taxon stojí mimo neoteropody: poslední zub např. leží v čelisti poměrně daleko vzadu, přímo pod očnicí. Autapomorfickými naopak jsou dopředu skloněné a silně zvětšené zuby na předčelistní kosti. Skloněné jsou i zuby na kosti zubní, zatímco nadměrné rozměry mají ještě zuby z přední části maxilly. Tento podivný chrup démonosaura jasně odlišuje od všech soudobých neoteropodů, přestože - jak poznamenal A. Cau - o desítky milionů let později stejné znaky vyvinou (pokaždé nezávisle na sobě*) bazální oviraptorosauři (jako je Incisivosaurus, nebo s ním možná synonymní Protarchaeopteryx), skanzoriopterygidní a "sapeornitidní" ptáci nebo noasauridní ceratosaur Masiakasaurus. Cau také našel ještě jednu zajímavou (přestože bezpochyby konvergentně nabytou) podobnost s oviraptorosaury, a to krátkou předočnicovou část lebky. Podobnosti v ozubení podle něj indikují stejnou potravu. Otázkou jen zůstává, jakou - mohlo jít o ovoce, ale i o hmyz (u maziakasaura se zase spekuluje o rybožravosti). Sues et al. (2011) konstatují, že unikátní ozubení a tvar lebky dokládá neočekávanou morfologickou různorodost teropodů už v takto rané fázi jejich evoluce.
    Holotyp démonosaura tvoří kostra s katalogovým označením CM 76821, sestávající z lebky, krčních obratlů a žeber. Ukazuje na zvíře o celkové délce asi 1,5 m, tedy relativně malých až středně velkých rozměrů.

Velmi pěkná rekonstrukce démonosaura, za níž stojí Jeffrey Martz. Skvěle patrné jsou dopředu vyčnívající zuby; protopeří je zde uměleckou licencí (přestože jeho přítomnost není nepravděpodobná). (Zdroj: smithsonianscience.org)

*Připomeňme si ovšem Cauovu nepublikovanou hypotézu "velkooviraptorosaurů", podle níž "sapeornitidi", skanzoriopterygidi a klasičtí oviraptorosauři tvoří klad vylučující všechny ostatní maniraptory, který spadá mezi avialanní ptáky (= má blíž k žijícím ptákům než k deinonychosaurům). Tuto hypotézu pohánějí podobnosti v tvaru a proporcích předočnicové části lebky a nápadně zvětšených zubech, sám Cau ji ovšem zamítl, neboť v jeho "megamatrici" vyžadovala o 26 kroků víc než standardní topologie.

Zdroje: